

Дата публикации: 01.09.2022
DOI: 10.51871/2588-0500_2022_06_03_6
УДК 612.395+591.5
ОБЗОР ФАКТОРОВ, ВЛИЯЮЩИХ НА ПРОЯВЛЕНИЯ КЛЕПТОПАРАЗИТИЗМА У ЖИВОТНЫХ
Ю.А. Гинзбург-Шик, Е.П. Муртазина, Е.С. Меськова
ФГБНУ «НИИ нормальной физиологии им. П.К. Анохина», г. Москва, Россия
Аннотация. В природе наблюдаются различные типы зоосоциальных взаимодействий, основными из которых являются конкуренция и кооперация. Одной из форм конкурентных взаимоотношений является клептопаразитизм. Клептопаразитизм представляет собой тайное или явное присвоение чужих ресурсов особями одного или разных видов. Данное явление широко развито у многих видов животных. По результатам многих исследований на проявление клептопаразитизма влияют различные факторы: внешней среды, групповые, а также индивидуальные особенности доноров и клептопаразитов. В представленном обзоре проведен анализ данных научной литературы, посвященных изучению клептопаразитизма, и систематизация факторов, влияющих на проявление клептопаразитизма у различных видов животных.
Ключевые слова: зоосоциальные взаимодействия, конкуренция, клептопаразитизм, производитель, донор.
REVIEW OF FACTORS INFLUENCING THE EXPRESSION OF KLEPTOPARASITISM IN ANIMALS
I.A. Ginsburg-Shik, E.P. Murtazina, E.S. Mes'kova
Anokhin Institute of Normal Physiology, Moscow, Russia
Annotation. There are different types of zoosocial interactions in nature, the main ones being competition and cooperation. One form of competitive interactions is kleptoparasitism. Kleptoparasitism is the covert or overt appropriation of alien resources by specimen of the same or different species. This phenomenon is widespread in many animal species. Many studies have shown that various factors, including environmental, group and individual characteristics of donors and parasites, influence the occurrence of kleptoparasitism. This study reviewed the scientific literature on kleptoparasitism, and systematised the factors that influence the occurrence of kleptoparasitism in different animal species.
Keywords: zoosocial interactions, competition, kleptoparasitism, scrounger, producer.
Введение. У животных, ведущих групповой образ жизни, а также у особей, обитающих в одной экологической нише, наблюдаются разнообразные социальные взаимодействия. Конкуренция и кооперация являются основными типами зоосоциальных взаимоотношений. Одним из видов конкурентных взаимодействий является клептопаразитизм – форма отношений, при которой один субъект, называемый паразитом (синонимы: мошенник – “scrounger”), присваивает пищу у другого – донора (синонимы: хозяин, производитель, продуцент – “producer”) [1-2].
Клептопаразитизм – широко распространенное среди животных явление, характерное для многих видов, включая насекомых, рыб, рептилий, птиц и млекопитающих. К клептопаразитизму относится кража не только пищи, но и любого другого ресурса, в том числе пространственных, материала гнезд, яиц и др. [3-4]. Клептопаразитизм является внутри- и межвидовой формой взаимодействий. Клептопаразитарные отношения различаются по промежутку времени между обнаружением ресурса и ее кражей, степени взаимодействия между вором и хозяином (одни клептопаразиты насильно присваивают пищу, не смотря на попытку хозяина защититься, другие же крадут пищу незаметно). Клептопаразиты делятся на облигатных и факультативных. Для облигатных паразитизм является единственным способом добычи ресурса, для факультативных паразитов воровство это лишь один из способов добычи [2].
Клептопаразитизм может являться одним из эволюционных факторов, оказывающих влияние на естественный отбор в связи с высокой ценностью пищевых ресурсов и их истощаемостью в некоторых экологических нишах, возможным изменением пищевых цепочек и передачей возбудителей различных заболеваний при осуществлении краж каких-либо ресурсов [3, 5, 6].
Цель настоящей работы – проанализировать современную научную литературу, посвященную исследованию роли различных средовых, популяционных, групповых и индивидуальных факторов в проявлении и особенностях формирования клептопаразитарных взаимодействий у животных в естественной среде обитания и в экспериментах на лабораторных животных.
На рисунке представлена структура данного обзора, включающая разделы, в которых рассматривается влияние на клептопаразитарные отношения следующих факторов: внешней среды, групповых и индивидуальных.
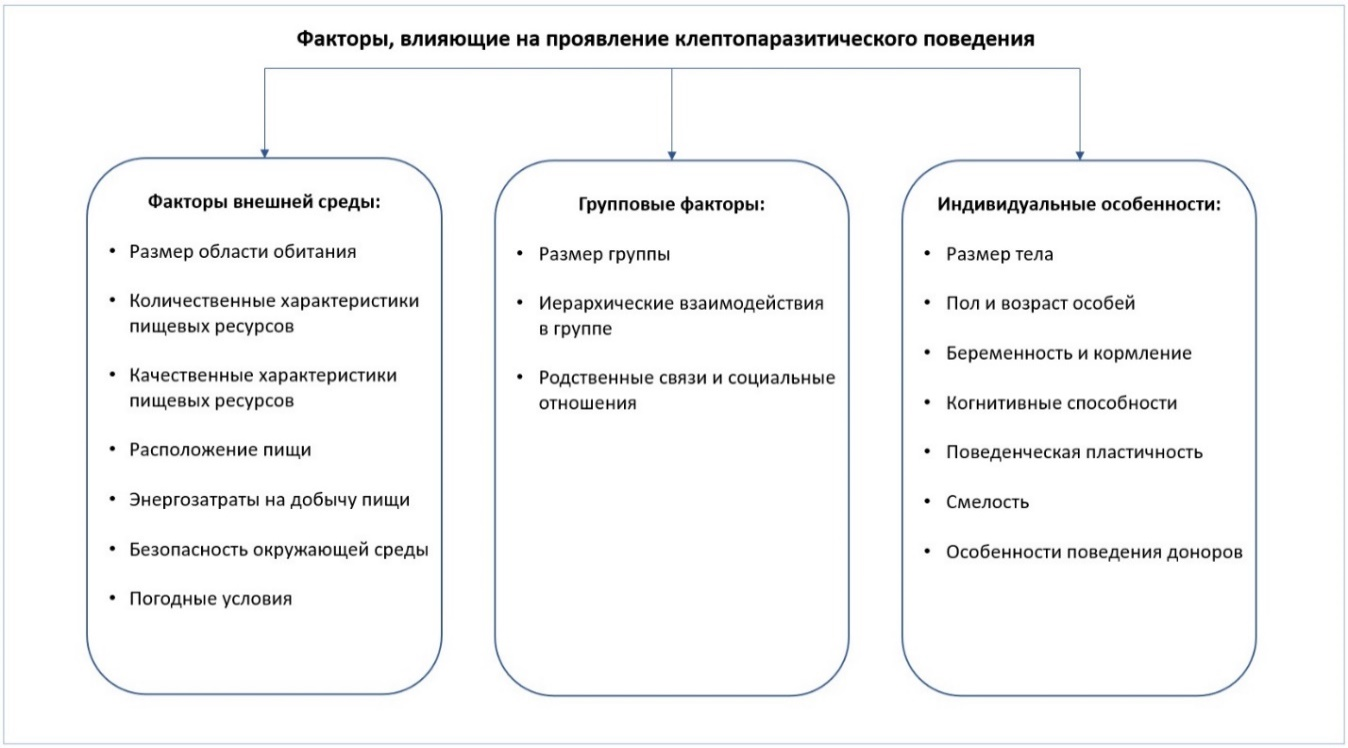
Рис. Классификация факторов, влияющих на проявление клептопаразитического поведения животных
Методы и организация исследования. В работе применялся метод контент-анализа литературных источников зарубежных исследователей.
Результаты исследования и их обсуждение. Влияние факторов окружающей среды на проявления клептопаразитизма. Пищедобывательная стратегия животных тесно связана с расположением пищи. В некоторых случаях особи становятся клептопаразитами из-за невозможности самостоятельно попасть в места обитания добычи, например, из-за крупного размера тела. Подобное поведение было изучено при наблюдении за охотой белоперых и серых рифовых акул. Белоперые рифовые акулы крупнее и не могут самостоятельно проникнуть в рифы, которые являются местообитанием их добычи. В исследовании, проведенном Labourgade P. и соавт. (2020), было установлено, что белоперые рифовые акулы проявляют клептопаразитическое поведение по отношению к серым рифовым акулам, потребляя рыбу, которая выплывала с глубин рифа, в связи с неудачными попытками охоты серых рифовых акул в недоступной для клептопаразитов зоны [7].
Было изучено влияние расположения пищи по отношению к области обитания на проявление тактики клептопаразитизма у особей различных популяций. При наблюдении за бабуинами было установлено, что присвоение пищи чаще происходит в центре, а не на периферии области обитания, а также в крупных областях по сравнению с более мелкими [8]. Эти результаты были подтверждены при исследовании тактики пищедобывания зебровых вьюрков [9]. Исследований, направленных на изучение данного вопроса, недостаточно для установления точных закономерностей. Можно предположить, что животные чаще питаются в центральных зонах области обитания в связи с их большей защищенностью от хищников.
Особый интерес представляет зависимость выбора особями пищедобывательной стратегии от расстояния между скоплениями пищи. Изучение поведения колюшек при изменении расположения пищи на дне аквариума выявило отсутствие достоверных взаимосвязей между выбором клептопаразитической или самостоятельной тактики от расположения пищи [10]. Приведенные примеры демонстрируют, что влияние расположения пищи на тип пищедобывательной тактики изучено недостаточно. Кроме того, расположение пищи напрямую связано с энергозатратами животного при достижении ресурсов. Возможно, при увеличении расстояния между пищевыми ресурсами, клептопаразитическая тактика может стать более выгодной в связи с уменьшением затрачиваемой энергии для достижения пищи.
Высокая энергетическая цена пищевого поведения обусловлена не только выбором пищедобывательной стратегии, но и энергией, которая необходима для обработки пищи. Влияние данного фактора было изучено при наблюдении за граклами, которые размачивают пищу для улучшения процессов проглатывания и переваривания. Установлено, что частота присвоения клептопаразитами уже размоченной пищи выше, чем сухой [11]. Таким образом, можно предположить, что животные выбирают тактику клептопаразитма, как более выгодную в том случае, когда энергозатраты на присвоение чужого ресурса меньше, чем на его самостоятельную добычу.
В ряде работ показано, что пищедобывательная стратегия зависит от количества и доступности пищевых ресурсов. В исследовании Matthew J. Hansen и соавт. (2016) продемонстрировано, что в областях большого скопления пищи рыбы чаще используют тактику клептопаразитизма [11]. Данное явление было подтверждено при изучении поведения чаек в местах обитания с различной доступностью пищевых ресурсов [12]. Можно предположить, что при высокой доступности пищи хозяева легче расстаются с добытыми пищевыми ресурсами. Кроме того, при наличии большого количества пищи, энергозатраты на их добычу меньше. Однако результаты исследования, проведенные Jolles J.W. и соавт. (2013), свидетельствуют об обратном. В ходе изучения поведения грачей, птицы добывали пищу, прикрепленную на веревках на большой высоте, что требовало более выраженных энергозатрат. Установлено, что при увеличении количества пищи, грачи реже проявляли клептопаразитизм. Авторами сделано предположение, что при увеличении количества пищи успешность тактики самостоятельного пищедобывания возрастает [13].
Качественные характеристики пищевых ресурсов, такие как размер пищи и её энергетическая ценность, являются важными параметрами при изучении пищедобывательных стратегий. Установлено, что крупные и энергетически ценные пищевые ресурсы чаще становятся объектами присвоения чаек и воронов [12, 14]. Вероятно, такое поведение обусловлено тем, что при малых размерах пищевых ресурсов энергозатраты на их добычу больше, чем их энергетическая ценность.
Безопасность окружающей среды является важным фактором, влияющим на проявление клептопаразитического поведения животных. Было проведено два противоречивых исследования, в которых изучалась взаимосвязь выбора пищедобывательной тактики особей в зависимости от степени риска нападения хищников. В исследовании Bugnyar T., Kotrschal K. (2002) было проведено сравнение частоты проявления клептопаразитизма при совместном кормлении воронов с волками и кабанами. Было установлено, что в условиях повышенного риска нападения волков частота клептопаразитизма увеличивается [15]. Однако наблюдение за воронами, проведенное позднее, показало отсутствие взаимосвязи между наличием хищников поблизости и выбором стратегии добывания пищи [14]. К безопасности окружающей среды можно также отнести наличие поблизости хозяина пищи. Данное явление было исследовано на пауках, в результате чего было установлено, что присвоение чужих пищевых ресурсов происходит чаще на паутинах с отсутствующими хозяевами [4]. Безопасность безусловно играет важную роль в пищевом поведении животных, однако причины столь разнообразных результатов исследований всё ещё остаются неизвестными.
Помимо факторов, связанных с характеристиками пищевых ресурсов, к внешним особенностям среды, влияющим на пищевое поведение животных, можно отнести погодные условия. Наблюдение за леопардами показало, что животные чаще используют присвоение чужих ресурсов в холодные месяцы [16]. Можно предположить, что в холодные месяцы животным требуется больше ресурсов для поддержания теплообмена на необходимом уровне.
Влияние групповых факторов на проявление клептопаразитизма. В ряде исследований выявлена взаимосвязь между тактикой пищедобывания особей и размером группы. Наблюдение за синицами показало повышение частоты проявления клептопаразитизма при увеличении размера группы [17]. Данные результаты подтверждает исследование, проведенное на крысах в лабораторных условиях [18]. Однако изучение поведения бабуинов установило обратную взаимосвязь: тактика присвоения чужих ресурсов наблюдалась чаще в малых группах [8].
Возможно, размер группы связан с другим значимым групповым социальным фактором – иерархическими взаимосвязями и соотношением рангов взаимодействующих животных. В исследовании Li M.F. и соавт. (2021) было показано, что доминантные особи мартышек чаще использовали тактику клептопаразитизма. Эти особи выбирали центральные безопасные места расположения, что способствовало их защищенности и присвоению ресурсов, а не поиску пищи на периферии ареала, которую осуществляли другие особи низших рангов [19]. Показано, что в группах бабуинов направленность присвоения пищи зависит от половых и иерархических взаимосвязей между особями: самки чаще присваивают пищу у самцов с высоким рангом и у низкодоминантных самок. При взаимодействиях в парах самцов-паразитов и самок-доноров не наблюдается взаимосвязь ранга особи с проявлением клептопаразитизма [8]. Изучение поведения птиц показало обратное – доминантные особи грачей и воронов реже используют тактику присвоения чужих ресурсов [13, 15] При исследовании пищедобывательных стратегий синиц и зебровых вьюрков не было выявлено взаимосвязи ранга особей и проявлением клептопаразитизма [17, 20]. Кроме иерархических взаимосвязей было изучено влияние степени близости социальных отношений и родственных связей на выбор пищедобывательной стратегии. Самки бабуинов чаще присваивают пищу у самок, с которыми имеют близкие социальные отношения, при этом степень родства не влияет на частоту проявления клептопаразитизма [8].
Индивидуальные особенности, влияющие на проявление клептопаразитизма. Проявление клептопаразитизма у млекопитающих и птиц по-разному зависит от пола и возраста особей. При наблюдении за поведением мартышек было установлено, что клептопаразитизм более распространен среди неполовозрелых особей мартышек обоих полов [19]. Молодые крысы чаще проявляли клептопаразитическое поведение по отношению к более зрелым конспецификам, чем зрелые к молодым [21]. Возможно, кража пищи молодыми млекопитающими является способом активного поиска полезной информации о свойствах различных пищевых ресурсов. Обнаружено, что беременные и кормящие самки бабуинов выбирают тактику присвоения чужих ресурсов чаще, чем фертильные [8]. В исследовании межвидового клептопаразитизма птиц было обнаружено, что присвоение пищевых ресурсов осуществлялось только взрослыми самками фрегатов, а донорами являлись только самки олушей [22]. Наблюдение за орлами позволило обнаружить, что клептопаразитами чаще являлись взрослые особи [23]. Исследование частоты встречаемости клептопаразитизма у синиц в зависимости от пола и возраста показало, что самки и взрослые особи чаще присваивают чужие пищевые ресурсы, чем молодые и самцы [17]. Имеется ряд исследований, в которых показано, что пол и возраст не влияет на тактику добывания пищи у граклов [11] и воронов [24]. У насекомых, например, у некоторых видов клопов клептопаразитизм является основной формой пищедобывания для самцов [25].
Существуют исследования влияния размера тела на тактику добывания ресурсов. При наблюдении за поведением фрегатов, было выявлено, что клептопаразиты были крупнее доноров [22]. Изучение взаимосвязи размера кижуча и тактики добывания пищи также показало, что мелкие рыбы чаще становились донорами, в отличие от крупных, которые реже остальных совершали кражи и никогда не становились донорами [26]. Вероятно, это связано с неспособностью мелких особей защитить собственные ресурсы, а также с их более низким рангом.
Поведенческая пластичность является важным фактором, влияющим на выбор тактики добывания пищи. Особи могут выбрать одну из стратегий поведения или менять ее в зависимости от факторов внешней среды, характера межсубъектных взаимоотношений и индивидуальных особенностей. Результаты моделирования взаимодействий между производителями и клептопаразитами позволили выявить, что выбор тактики может зависеть от осведомленности субъекта об успешности добывания пищи сородичами, результативности собственных попыток совершения воровства или самостоятельного добывания пищи [27]. Эти теоретические результаты подтверждаются эмпирическими наблюдениями за поведением граклов, которые показали, что высокая поведенческая пластичность позволяет им менять тактику добывания корма (переходить к самостоятельной пищедобывательной стратегии) при изменениях условий окружающей среды, таких как доступность пищи и поведение сородичей [28]. Исследование, проведенное на чешуйчатогрудых амадинах, показало, что эти птицы также меняют стратегию пищедобывания в зависимости от поведения сородичей [29]. При исследовании бенгальских вьюрков было установлено, что особи, которые обучались медленнее, обладали большей поведенческой пластичностью и чаще меняли тактику пищедобывательного поведения (производитель или паразит) при изменениях окружающей среды [30].
Выработка пластичных приспособительных форм поведения требует развитых когнитивных способностей, которые взаимосвязаны с нейрофизиологическими и анатомическими характеристиками головного мозга. Был проведен анализ клептопаразитизма у птиц, который показал, что остаточный размер мозга у семейств с развитым клептопаразитизмом был больше, что могло сыграть важную роль в эволюции данного вида конкурентного поведения [31].
К индивидуальным особенностям животных можно отнести смелость. Авторами, наблюдавшими за поведением грачей, установлено, что доля клептопаразитов среди смелых особей больше [13]. Однако есть исследование, в котором было установлено, что менее смелые казарки чаще становятся клептопаразитами. Авторы предполагают, что это связано с тем, что менее смелые казарки проявляют меньшую активность при самостоятельном добывании пищи и более склонны оставаться в группе сородичей [32].
Поведение доноров также влияет на проявление клептопаразитизма другими особями. В исследованиях рассмотрены две тактики поведения птиц – употребление пищи на месте добывания или употребление пищи после перемещения с места добычи. При наблюдении за воронами было установлено, что особи, употребляющие пищу на месте добывания пищи, в окружении остальных сородичей, чаще подвергаются клептопаразитизму [24, 33]. Схожие результаты были получены при наблюдении за леопардами, поднимающими добычу на деревья, вероятно с целью избегания клептопаразитизма со стороны других леопардов и гиен. В результате было установлено, что риск нападения клептопаразита на 67% ниже при перемещении добычи на дерево, чем при поедании на земле [16].
В итоговой таблице приведены сводные данные по видам животных и конкретным публикациям, посвященным изучению связи различных факторов и клептопаразитизма.
Таблица
Факторы, влияющие на проявление клептопаразитизма у различных видов животных
|
Группа факторов |
Факторы |
Виды животных и птиц |
Авторы исследований |
|
Факторы внешней среды |
Расположение пищи |
Рифовые акулы |
Labourgade P., 2020 |
|
Колюшки |
Matthew J. Hansen, 2016 |
||
|
Энергозатраты |
Граклы |
Morand-Ferron J., 2006 |
|
|
Количественные характеристики пищевых ресурсов |
Колюшки |
Matthew J. Hansen, 2016 |
|
|
Грачи |
Jolles J.W., 2013 |
||
|
Качественные характеристики пищевых ресурсов |
Чайки |
Steele W.K., 1995 |
|
|
Вороны |
Renee Robinette Ha, 2003 |
||
|
Размер области обитание и пространственное расположение особей |
Бабуины |
King A.J., 2009 |
|
|
Зебровые вьюрки |
Flynn R.E., 2008 |
||
|
Безопасность окружающей среды |
Вороны |
Bugnyar T., 2002 |
|
|
Вороны |
Renee Robinette Ha, 2003 |
||
|
Пауки |
Meira F.A., 2021 |
||
|
Погодные условия |
Леопарды |
Balme G.A., 2017 |
|
|
Групповые факторы |
Размер группы |
Бабуины |
King A.J., 2009 |
|
Синицы |
Aplin L.M., 2017 |
||
|
Крысы |
Alfaro L., 2020 |
||
|
Иерархические взаимосвязи в группе |
Мартышки |
Li M.F., 2021 |
|
|
Грачи |
Jolles J.W., 2013 |
||
|
Вороны |
Bugnyar T., 2002 |
||
|
Бабуины |
King A.J., 2009 |
||
|
Синицы |
Aplin L.M., 2017 |
||
|
Зебровые вьюрки |
Beauchamp G., 2006 |
||
|
Родственные связи и социальные отношения |
Бабуины |
King A.J., 2009 |
|
|
Индивидуальные особенности |
Пол и возраст особей |
Граклы |
Morand-Ferron J., 2006 |
|
Вороны |
Gallego‐Abenza M., 2019 |
||
|
Мартышки |
Li M.F., 2021 |
||
|
Фрегаты |
Austin R.E., 2021 |
||
|
Олуши |
Austin R.E., 2021 |
||
|
Орлы |
Margalida A., 2017 |
||
|
Синицы |
Aplin L.M., 2017 |
||
|
Клопы |
Arnqvist G., 2006 |
||
|
Беременность и кормление |
Бабуины |
King A.J., 2009 |
|
|
Размер тела |
Фрегаты |
Austin R.E., 2021 |
|
|
Кижучи |
Phillips J.A., 2018 |
||
|
Когнитивные способности |
Птицы различных семейств |
Morand-Ferron J., 2007 |
|
|
Смелость |
Грачи |
Jolles J.W., 2013 |
|
|
Казарки |
Kurvers R.H.J.M., 2010 |
||
|
Поведенческая пластичность |
Граклы |
Morand-Ferron J., 2007 |
|
|
Манникенны мускатного ореха |
Morand-Ferron J., 2011 |
||
|
Бенгальские вьюрки |
Dagues M.B., 2020 |
||
|
Поведение доноров |
Вороны |
Gallego‐Abenza M., 2019 |
|
|
Вороны |
Gallego‐Abenza M., 2020 |
||
|
Леопарды |
Balme G.A., 2017 |
Заключение. В данном обзоре научной литературы приведены результаты исследований, посвященных изучению клептопаразитизма – конкурентной формы поведения животных, при которой особи присваивают чужие ресурсы. Из приведенных исследований можно сделать вывод, что на выбор этой стратегии добывания пищи влияет множество факторов, которые можно объединить в три группы: средовые, групповые и индивидуальные особенности животных. Большинство научных работ проведено этологами при наблюдениях за животными в естественной среде обитания. Отдельные группы исследователей разрабатывают математические модели взаимодействий (“producer-scrounger”) между добытчиками и клептопаразитами, которые позволяют изучать влияние отдельных факторов (например, количество пищи, мотивационное состояние, размер группы или ареала обитания) при конкуренции животных за ресурсы [34-36]. Только небольшое число работ осуществлено на лабораторных видах животных в контролируемых условиях экспериментальных взаимодействий между ними. Вследствие этого, мало изучены психозоосоциальные, нейрофизиологические и метаболические механизмы формирования донорского и клептопаразитического типов поведения. Исходя из вышеизложенного, представляется актуальным исследование механизмов развития клептопаразитизма на группах лабораторных животных с контролируемыми условиями содержания, количеством ресурсов, наблюдениями за их индивидуальным поведением и взаимодействиями. Такие условия позволили бы изучить генетические, биохимические, онтогенетические и другие особенности особей, которые могут влиять на последующее проявление клептопаразитарного или донорского поведения. Экспериментальные условия дают возможность регистрировать нейрофизиологические и метаболические показатели в процессе взаимодействий между животными, что позволит исследовать механизмы, обеспечивающие процессы высшей нервной деятельности социального поведения. Кроме того, изучение клептопаразитарных отношений имеет высокую фундаментальную и практическую значимость для понимания эволюционных механизмов и процессов использования (в том числе истощения) природных ресурсов.
СПИСОК ЛИТЕРАТУРЫ
- Brockmann, H. J. Kleptoparasitism in birds / J. Brockmann, C. J. Barnard // Animal Behaviour. – 1979. – Vol. 27. – pp. 487–514. DOI: 10.1016/0003-3472(79)90185-4.
- Iyengar, E. V. Kleptoparasitic interactions throughout the animal kingdom and a re-evaluation, based on participant mobility, of the conditions promoting the evolution of kleptoparasitism / E. V. Iyengar // Biological Journal of the Linnean Society. – 2008. – Vol. 93. – № 4. – pp. 745-762. DOI: 10.1111/j.1095-8312.2008.00954.x.
- Wynia, A. L. Evidence of nest material kleptoparasitism in Worm‐eating Warblers (Helmitheros vermivorum) in east‐central Arkansas, USA / A. L. Wynia, J. C. Bednarz // Ecology and evolution. – 2021. – Vol. 11. – № 10. – pp. 4996-5000. DOI: 10.1002/ece3.7339.
- Meira, F.A. Araneophagy as an alternative foraging tactic to kleptoparasitism in two Argyrodinae (Araneae: Theridiidae) species / F. A. Meira, R. R. Moura, M. O. Gonzaga // Behavioural processes. – 2021. – Vol. 189. URL: https://www.sciencedirect.com/science/article/abs/pii/S0376635721001297?via%3Dihub (accessed 23.06.2022). DOI: 10.1016/j.beproc.2021.104445.
- William, L. Vickery Producing and scrounging can have stabilizing effects at multiple levels of organization / L. William // Ecology and evolution. – 2020. – Vol. 10. – № 6. – pp. 2969-2978. DOI: 10.1002/ece3.6111.
- Evidence for Common Horizontal Transmission of Wolbachia among Ants and Ant Crickets: Kleptoparasitism Added to the List / Tseng S., Hsu P., Lee C. [et al] // – 2020. – Vol. 8. – № 6. URL: https://www.mdpi.com/2076-2607/8/6/805 (accessed 23.06.2022). DOI: 10.3390/microorganisms8060805.
- Heterospecific foraging associations between reef-associated sharks: first evidence of kleptoparasitism in sharks / Labourgade P., Ballesta L., Huveneers C. [et al] // – 2020. – Vol. 101. – № 11. URL: https://esajournals.onlinelibrary.wiley.com/doi/abs/10.1002/ecy.3117 (accessed 23.06.2022). DOI: 10.1002/ecy.3117.
- King, A. J. Ecological, social, and reproductive factors shape producer–scrounger dynamics in baboons / A. J. King, N. J. B. Isaac, G. Cowlishaw // Behavioral Ecology. – 2009. – Vol. 20. – № 5. – pp. 1039-1049. DOI: 10.1093/beheco/arp095.
- Flynn, R. E. Producer–Scrounger Games in a Spatially Explicit World: Tactic Use Influences Flock Geometry of Spice Finches / R. E. Flynn, Giraldeau // Ethology. – 2008. – Vol. 107. – № 3. – pp. 249-257. DOI: 10.1046/j.1439-0310.2001.00657.x.
- Environmental quality determines finder-joiner dynamics in socially foraging three-spined sticklebacks (Gasterosteus aculeatus) / M. Hansen, A. Ward, I. Fürtbauer, A. King // Behavioral Ecology and Sociobiology. – 2016. – Vol. 70. – pp. 889-899. DOI: 10.1007/s00265-016-2111-5.
- Morand-Ferron, J. Stealing of dunked food in Carib grackles (Quiscalus lugubris) / J. Morand-Ferron, M. Veillette, L. Lefebvre // Behavioural Processes. – 2006. – Vol. 73. – № 3. – pp. 342-347. DOI: 10.1016/j.beproc.2006.08.006.
- Steele, W. K. Factors Influencing Rate and Success of Intraspecific Kleptoparasitism among Kelp Gulls (Larus dominicanus) / W. K. Steele, P. A. R. Hockey // The Auk. – 1995. – Vol. 112. – № 4. – pp. 847-859. DOI: 10.2307/4089017.
- Jolles, J. W. Dominance, pair bonds and boldness determine social-foraging tactics in rooks, Corvus frugilegus / J. W. Jolles, L. Ostojić, N. S. Clayton // Animal Behaviour. – 2013. – Vol. 85. – № 6. – pp. 1261-1269. DOI: 10.1016/j.anbehav.2013.03.013.
- Ha, R. R. Effects of ecology and prey characteristics on the use of alternative social foraging tactics in crows, Corvus caurinus / R. R. Ha, J. C. Ha // Animal Behaviour. – 2003. – Vol. 66. – № 2. – pp. 309-316. DOI: 10.1006/anbe.2003.2182.
- Bugnyar, T. Scrounging Tactics in Free-Ranging Ravens, Corvus corax / T. Bugnyar, K. Kotrschal // Ethology. – 2002. – Vol. 108. – № 11. – pp. 993-1009. DOI: 10.1046/j.14390310.2002.00832.x.
- Caching reduces kleptoparasitism in a solitary, large felid / G. Balme, J. Miller, R. Pitman, L. Hunter // Journal of Animal Ecology. – 2017. – Vol. 86. – № 3. – pp. 634-644. DOI: 10.1111/1365-2656.12654.
- Aplin, L. M. Stable producer-scrounger dynamics in wild birds: sociability and learning speed covary with scrounging behavior / L. M. Aplin, J. Morand-Ferron // Biological sciences. – 2017. – Vol. 284. – № 1852. URL: https://royalsocietypublishing.org/doi/10.1098/rspb.2016.2872 (accessed 23.06.2022). DOI: 10.1098/rspb.2016.2872.
- Alfaro, L. Effect of group size on producer-scrounger strategies of Wistar rats / L. Alfaro, R. Cabrera // Behavioural processes. – 2021. – Vol. 182. URL: https://www.sciencedirect.com/science/article/abs/pii/S0376635720304733?via%3Dihub (accessed 23.06.2022). DOI: 10.1016/j.bproc.2020.104280
- Be early or be tolerated: vervet monkey, Chlorocebus pygerythrus, foraging strategies in a dispersed resource / M. Li, J. Arseneau-Robar, E. Smeltzer, J. Teichroeb // Animal Behaviour. – 2021. – Vol. 176. – pp. 1-15. DOI: 10.1016/J.ANBEHAV.2021.03.010.
- Beauchamp, G. Phenotypic Correlates of Scrounging Behavior in Zebra Finches: Role of Foraging Efficiency and Dominance / G. Beauchamp // Ethology. – 2006. – Vol. 112. – № 9. –pp. 873-878. DOI: 10.1111/j.1439-0310.2006.01241.x.
- Food stealing by young Norway rats (Rattus norvegicus) / B. Galef, C. Marczinski, K. Murray, E. Whiskin // Journal of Comparative Psychology. – 2001. – Vol. 115 – № 1. – pp. 16-21. DOI: 10.1037//0735-7036.115.1.16.
- Green Interspecific and intraspecific foraging differentiation of neighbouring tropical seabirds / Austin R. E., De Pascalis F., Votier S. C. [et al] // Movement Ecology. – 2021. – Vol. 9. – № 27. URL: https://movementecologyjournal.bimedcentral.com/articles/10.1186/s40462-021-00251-z (accessed 23.06.2022). DOI: 10.1186/s40462-021-00251-z.
- Behavioral evidence of hunting and foraging techniques by a top predator suggests the importance of scavenging for preadults / Margalida A., Colomer M.À., Sánchez R. [et al] // Ecology and evolution. – 2017. – Vol. 7. – № 12. – pp. 4192-4199. DOI: 10.1002/ece3.2944.
- GallegoAbenza, M. Decision time modulates social foraging success in wild common ravens, Corvus corax / M. GallegoAbenza, M. Loretto, T. Bugnyar // Ethology. – 2019. – Vol. 126. – № 4. – pp. 413-422. DOI: 10.1111/eth.12986.
- Arnqvist, G. Sex-role reversed nuptial feeding reduces male kleptoparasitism of females in Zeus bugs (Heteroptera; Veliidae) / G. Arnqvist, T. M. Jones, M. A. Elgar // Biology letters. – 2006. – Vol. 2. – № 4. URL: https://royalsocietypublishing.org/doi/10.1098/rsbl.2006.0545?url_ver=Z39.882003&rfr_id=ori:rid:crosref.org&rfr_dat=cr_pub%20%200pubmed (accessed 23.06.2022). DOI: 10.1098/rsbl.2006.0545.
- An asymmetric producer-scrounger game: body size and the social foraging behavior of coho salmon / Phillips J. A., Peacock S. J., Bateman A. [et al] // Theoretical ecology. – 2018. – Vol. 11. – № 4. – pp. 417-431. DOI: 10.1007/s12080-018-0375-2.
- Dubois, F. Frequency-dependent payoffs and sequential decision-making favour consistent tactic use / F. Dubois, L. Giraldeau, D. Réale // Proceedings of the Royal Society B: Biological Sciences. – 2012. – Vol. 279. – № 1735. URL: https://royalsocietypublishing.org/doi/full/10.1098/rspb.2011.2342 (accessed 23.06.2022). DOI: 10.1098/rspb.2011.2342.
- Morand-Ferron, J. Wild Carib grackles play a producer–scrounger game / J. Morand-Ferron, L.-A. Giraldeau, L. Lefebvre // Behavioral Ecology. – 2007. – Vol. 18. – № 5. – pp. 916–921. DOI: 10.1093/beheco/arm058.
- Morand-Ferron, Persistent individual differences in tactic use in a producer–scrounger game are group dependent / J. Morand-Ferron, G. Wu, L. Giraldeau // Animal Behaviour. – 2011. – Vol. 82. – № 4. – pp. 811-816. DOI: 10.1016/j.anbehav.2011.07.014.
- Dagues, M. B. Individual differences in learning ability are negatively linked to behavioural plasticity in a frequency-dependent game / M. B. Dagues, C. L. Hall, L. Giraldeau // Animal Behaviour. – 2020. – Vol. 159. – pp. 97-103. DOI: 10.1016/j.anbehav.2019.11.011.
- Morand-Ferron, J. Food stealing in birds: brain or brawn? / J. Morand-Ferron, D. Sol, L. Lefebvre // Animal Behaviour. – 2007. – Vol. 74. – № 6. – pp. 1725-1734. DOI: 10.1016/j.anbehav.2007.04.031.
- The effect of personality on social foraging: shy barnacle geese scrounge more / Kurvers R. H. J. M., Prins H. H. T., Wieren S. E. [et al] // Biological sciences. – 2010. – Vol. 277. – № 1681. – pp. 601-608. DOI: 10.1098/rspb.2009.1474.
- Gallego-Abenza, M. Decision time modulates social foraging success in wild common ravens, Corvus corax / M. Gallego-Abenza, M. Loretto, T. Bugnyar // Ethology. – 2020. – Vol. 126. – № 4. – pp. 413-422. DOI: 10.1111/eth.12986.
- Dubois, F. Consequences of multiple simultaneous opportunities to exploit others' efforts on free riding / F. Dubois, E. Richard-Dionne // Ecology and evolution. – 2017. – Vol. 10. – № 10. – pp. 4343-4351. DOI: 10.1002/ece3.6201.
- Toyokawa, W. Scrounging by foragers can resolve the paradox of enrichment / W. Toyokawa // Royal Society. – 2020. – Vol. 4. – № 3. URL: https://royalsocietypublishing.org/doi/10.1098/rsos.160830?url_ver=Z39.88-2003&rfr_id=ori:rid:crosref.org&rfr_dat=cr_pub%20%200pubmed (accessed 27.06.2022). DOI: 10.1098/rsos.160830.
- Kleptoparasitic interactions modeling varying owner and intruder hunger awareness / Chowdhury N., Kentiba K., Mirajkar Y. [et al] // Theoretical population biology. – 2020. – Vol. 136. – pp. 31-40. DOI: 10.1016/j.tpb.2020.11.002.
СВЕДЕНИЯ ОБ АВТОРАХ:
Юлия Андреевна Гинзбург-Шик – специалист, ФГБНУ «НИИ нормальной физиологии им. П.К. Анохина», Москва, e-mail: Адрес электронной почты защищен от спам-ботов. Для просмотра адреса в вашем браузере должен быть включен Javascript..
Елена Павловна Муртазина – кандидат медицинских наук, ведущий научный сотрудник, ФГБНУ «НИИ нормальной физиологии им. П.К. Анохина», Москва, e-mail: Адрес электронной почты защищен от спам-ботов. Для просмотра адреса в вашем браузере должен быть включен Javascript..
Екатерина Сергеевна Меськова – специалист, ФГБНУ «НИИ нормальной физиологии им. П.К. Анохина», Москва, e-mail: Адрес электронной почты защищен от спам-ботов. Для просмотра адреса в вашем браузере должен быть включен Javascript..
INFORMATION ABOUT THE AUTHORS:
Yulia Andreevna Ginsburg-Shik – Specialist, Anokhin Institute of Normal Physiology, Moscow, e-mail: Адрес электронной почты защищен от спам-ботов. Для просмотра адреса в вашем браузере должен быть включен Javascript..
Elena Pavlovna Murtazina – Candidate of Medical Sciences, Senior Researcher, Anokhin Institute of Normal Physiology, Moscow, e-mail: Адрес электронной почты защищен от спам-ботов. Для просмотра адреса в вашем браузере должен быть включен Javascript..
Ekaterina Sergeevna Mes’kova – Specialist, Anokhin Institute of Normal Physiology, Moscow, e-mail: Адрес электронной почты защищен от спам-ботов. Для просмотра адреса в вашем браузере должен быть включен Javascript..
Для цитирования: Гинзбург-Шик Ю.А. Обзор факторов, влияющих на проявления клептопаразитизма у животных / Ю. А. Гинзбург-Шик, Е. П. Муртазина, Е. С. Меськова // Современные вопросы биомедицины. – 2022. – Т. 6. – № 3. DOI: 10.51871/2588-0500_2022_06_03_6
For citation: Ginzburg-Shik I.A., Murtazina E.P., Meskova E.S. Review of factors influencing the expression of kleptoparasitism in animals. Modern Issues of Biomedicine, 2022, vol. 6, no. 3. DOI: 10.51871/2588-0500_2022_06_03_6