

Дата публикации: 01.03.2025
DOI: 10.24412/2588-0500-2025_09_01_3
УДК 612.82
РЕСПИРАТОРНЫЙ И ГОМЕОСТАТИЧЕСКИЙ ЭФФЕКТ БЛОКАДЫ NMDA-РЕЦЕПТОРОВ НЕЙРОНОВ ПОЗАДИТРАПЕЦИЕВИДНОГО ЯДРА У ВЗРОСЛЫХ АНЕСТЕЗИРОВАННЫХ СПОНТАННО ДЫШАЩИХ КРЫС
Е.Н. Глазкова1, О.В. Борисова1, О.Г. Кузнецова1, В.С. Татарников2
1Федеральное государственное бюджетное образовательное учреждение высшего образования «Самарский государственный медицинский университет» Минздрава России, г. Самара, Россия
2ООО «Техсервис», г. Самара, Россия
Аннотация. На анестезированных уретаном спонтанно дышащих крысах в условиях острого эксперимента изучено влияние блокады NMDA-рецепторов нейронов позадитрапециевидного ядра на параметры разрядов диафрагмального нерва, артериальное давление и объемную концентрацию CO2 в выдыхаемом газе (FETСО2). После двусторонней микроинъекции селективного блокатора NMDA-рецепторов кетамина в позадитрапециевидном ядре было выявлено увеличение времени экспирации более чем в 2 раза, повышение амплитуды разрядов диафрагмального нерва в среднем на 30% и снижение FETСО2 в среднем на 0,6 мм рт. ст. по сравнению с данными параметрами до воздействия (во всех случаях р<0,05). Длительность разрядов диафрагмального нерва и уровень системного артериального давления достоверно не изменялись. Были сделаны выводы, что нейроны в области позадитрапециевидного ядра получают глутаматную стимуляцию в отсутствии афферентных раздражителей. Эндогенный глутамат в позадитрапециевидного ядра через NMDA-рецепторы регулирует баланс амплитуды и частоты разрядов диафрагмального нерва, а также поддерживает газовый гомеостаз крови на необходимом уровне в условиях спонтанного дыхания.
Ключевые слова: позадитрапециевидное ядро, NMDA-рецепторы, дыхание, артериальное давление.
RESPIRATORY AND HOMEOSTATIC EFFECT OF BLOCKADE OF NMDA RECEPTORS IN RETROTRAPEZOID NUCLEUS NEURONS IN ADULT ANESTHETIZED SPONTANEOUSLY BREATHING RATS
E.N. Glazkova1, O.V. Borisova1, O.G. Kuznetsova1, V.S. Tatarnikov2
1Samara State Medical University, Samara, Russia
2Techservice LLC, Samara, Russia
Abstract. In urethane-anesthetized spontaneously breathing rats under acute experiment conditions, the effect of blockade of NMDA receptors of the retrotrapezoid nucleus on parameters of phrenic nerve discharges, blood pressure and СО2 volume concentration in exhaled gas (FETСО2) was studied. After bilateral microinjection of selective NMDA receptor blocker (ketamine) into the retrotrapezoid nucleus we have found an increase in the expiration time by more than 2 times, an increase in the phrenic nerve discharge amplitude by an average of 30% and a decrease in FETCO2 by an average of 0.6 mm of Hg compared with these parameters before exposure (in all cases p<0.05). The phrenic nerve discharge duration and systemic blood pressure level did not change significantly. It was concluded that retrotrapezoid nucleus neurons receive glutamate stimulation in the absence of afferent stimuli. Endogenous glutamate in retrotrapezoid nucleus through NMDA receptors regulates the balance of phrenic nerve discharge amplitude and frequency and maintains blood gas homeostasis at the required level under conditions of spontaneous respiration.
Keywords: retrotrapezoid nucleus, NMDA receptors, respiration, blood pressure.
Введение. Дыхание необходимо для поддержания гомеостаза газов крови, поэтому понимание клеточных и молекулярных механизмов регуляции дыхания остается приоритетом медицинских исследований. Позадитрапециевидное ядро (ПТЯ) является кандидатом на главные центральные хеморецепторы дыхания, которые необходимы для контроля парциального напряжения СО2 в артериальной крови. ПТЯ расположено в ростральной части продолговатого мозга, близко к вентральной поверхности (от 0 до 250 мкм) и состоит из билатерального скопления глутаматергических нейронов (около 1000 единиц с каждой стороны у крыс), которые синтезируют специфический белок (гомеодоменовый транскрипционный фактор Phox2b) на протяжении всей жизни. Эти нейроны имеют низкую тоническую фоновую активность (0-2 Гц) у наркотизированных взрослых крыс и активируются до 10-15 Гц при изменении FETСО2 с 5% до 9% [1]. Нейроны ПТЯ иннервируют понтомедуллярные области, которые генерируют дыхательный ритм и паттерн (все отделы вентральной дыхательной группы, вентролатеральную часть ядра одиночного пути, ядро Келликера-Фузе) [2]. Повреждение или химическая блокада нейронов ПТЯ в значительной степени ослабляет центральную хемочувствительность у взрослых крыс, тогда как их активация увеличивает частоту дыхания, амплитуду вдоха и активный выдох. Мутации гена Phox2b вызывают врожденный синдром центральной гиповентиляции у людей, а селективная делеция Phox2b нейронов ПТЯ генетическими средствами у мышей снижает респираторный центральный хеморефлекс [3].
Нейроны ПТЯ получают возбуждающий глутаматергический вход через одно переключение в ядре одиночного пути от периферических хеморецепторов (каротидных телец), которые регулируют парциальное напряжение О2 в артериальной крови и имеют низкую тоническую активность в покое [2]. Наличие других глутаматергических входов к ПТЯ не известно. ПТЯ и периферические хеморецепторы являются ключевыми структурами, участвующими в поддержании гомеостаза газов крови [4]. В то же время роль эндогенного глутамата и различных типов глутаматных рецепторов ПТЯ (в частности, NMDA) в поддержании гомеостаза СО2 в выдыхаемом газе, а также в регуляции АД и параметров разрядов диафрагмального нерва (РДН) в эукапнических условиях спонтанного дыхания не изучена, что и является целью настоящего исследования.
Методы и организация исследования. Во всех проведенных экспериментах придерживались рекомендаций, содержащихся в директивах 2010/63/ЕU Европейского парламента и совета Европейского Союза по охране животных, используемых в научных целях. Экспериментальные протоколы были утверждены Комитетом по биоэтике Самарского государственного медицинского университета. До исследований животные содержались в виварии Самарского государственного медицинского университета в стандартных условиях.
Анестезия была индуцирована уретаном (начальная доза – 1,5 г/кг внутрибрюшинно и при необходимости дополнена 0,5 г/кг внутривенно). Трахею интубировали ниже гортани. Животные дышали спонтанно атмосферным воздухом. Температура тела измерялась ректально и поддерживалась на уровне 37°C с помощью сервогрелки. Объемная концентрация CO2 в конечной порции выдыхаемого газа (FETСО2) контролировалась в ходе эксперимента быстрореагирующим анализатором углекислоты (ГАУ-5, Россия). Глубина анестезии оценивалась по рефлексу отдергивания при щипке лапы и корнеальному рефлексу. Уровень анестезии был достаточным для устранения болевых рефлексов, а при необходимости вводились дополнительные дозы анестетика. Голова животного фиксировалась в стереотаксическом аппарате вентральной поверхностью вверх. Хирургическим путем открывали вентральную поверхность продолговатого мозга. Более подробно подход описан в наших ранних работах [5-7]. Затем экзартикулировали и удаляли ключицу, перевязывали и пересекали подключичную вену вместе с мягкими тканями, под веной в нервном сплетении находили диафрагмальный нерв и выделяли его на протяжении 5-6 мм. Формировали ванночку из мягких тканей, периферический конец нерва пересекали, накладывали на биполярные вольфрамовые электроды и заливали теплым вазелиновым маслом.
РДН были усилены с помощью усилителя переменного тока (DL 314N-725, Neurobiolab Company, Россия). Амплитуду РДН оценивали по их интегрированной активности. Артериальное давление (АД) измеряли в левой бедренной артерии через катетер, соединенный с малогабаритным индукционным датчиком давления и полиграфом. Сигналы были обработаны и сохранены с использованием аналого-цифрового преобразователя (L-Card E14-440, Россия) и прог-раммного обеспечения «PowerGraph software» (version 3.3. Professional). Микроинъекции в ПТЯ объемом 50 нл делали через стеклянную микропипетку с диаметром кончика 20-30 мкм с помощью микролитрового инъектора (МКШ-1, Россия). Микроинъекции выполняли билатерально с вентральной поверхности в область локализации ПТЯ: 2 мм ростральнее места выхода верхнего корешка подъязычного нерва, 1,7 мм латеральнее средней линии и на глубину 100 мкм от вентральной поверхности. В исследовании использовали селективный антагонист NMDA-рецепторов – кетамин гидрохлорид (4 мМ/л), растворенный в изотоническом растворе. В начале эксперимента делали контрольную микроинъекцию изотонического раствора в ПТЯ, затем через 10 минут микроинъекцию кетамина, регистрировали параметры АДН, АД и FETСО2 через 5, 15 и 30 минут.
Статистический анализ был выполнен с помощью программы «STATISTICA 6.0» (Statsoft). Данные представлены как среднее значение ± стандартная ошибка. Для сравнения параметров АД, РДН, FETСО2 до и после воздействия использовали парный Т-критерий Вилкоксона (Wilcoxon signed-rank test). Изменения средних величин каждого из параметров считались статистически значимыми при р<0,05.
Результаты исследования и их обсуждение. У спонтанно дышащих уретаном взрослых крыс в условиях анестезии частота генерации РДН составила 37,8±0,6 разрядов в минуту, амплитуда РДН – 16,5±0,4 относительных единиц, длительность РДН – 0,46±0,02 с, а время экспираторной фазы – 1,13±0,02 с. Уровень системного АД был в среднем 114,2±5,3/69,1±4,0 мм рт. ст. (рис. А). FETСО2 колебалась в пределах 4,8±0,1 объемных процентов.
После блокады NMDA-рецепторов нейронов ПТЯ путем двусторонней микроинъекции кетамина в это ядро были выявлены достоверные изменения FETСО2 и амплитудно-скоростных параметров РДН. В частности, через 1 минуту после микроинъекции FETСО2 достоверно повысилась до 5,3±0,1 объемных процентов, что в среднем на 10,4% больше, чем в интактном состоянии. Частота генерации РДН достоверно снизилась до 25,1±0,4 разрядов в минуту. Время экспираторной фазы и амплитуда РДН также достоверно возрастали в среднем на 100,1% и 30,3%, и составили 2,28±0,04 с и 21,5 относительных единиц соответственно (во всех случаях р<0,05). Длительность РДН достоверно не изменялась и составила 0,47±0,02 с. Двусторонняя микроинъекция кетамина в ПТЯ не оказывала влияния на системное АД, которое оставалось в пределах 115,4±6,2/68,7±4,3 мм рт. ст. после воздействия (рис. Б).
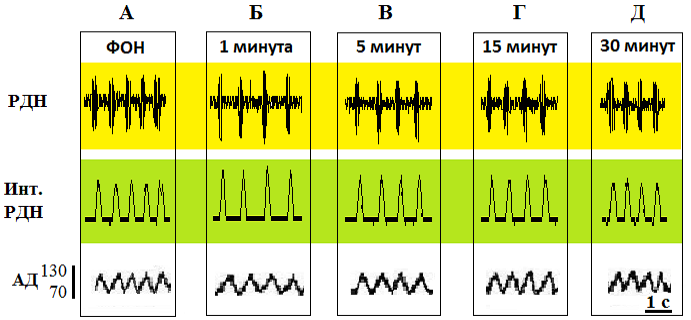
Рис. Эффект блокады NMDA-рецепторов нейронов ПТЯ на амплитудно-скоростные параметры РДН и уровень системного АД
Примечание: ПТЯ – позадитрапециевидное ядро; РДН – разряды диафрагмального нерва; АД – артериальное давление; А – фон, Б – через 1 минуту после двусторонней микроинъекции селективного блокатора NMDA-рецепторов кетамина в ПТЯ, В – через 5 минут, Г – через 15 минут, Д – через 30 минут. Верхняя трасса – нативные РДН, средняя трасса – интегрированные РДН, нижняя трасса – АД в бедренной артерии. Вертикальная линия снизу слева – 60 мм рт. ст., горизонтальная линия снизу справа – 1 секунда.
Через 5 минут после блокады NMDA-рецепторов в ПТЯ сохранялись достоверные изменения параметров РДН и FETСО2. В то же время увеличение экспираторной фазы и амплитуды РДН стало менее выраженным и составило 1,68±0,03 с и 19,1±0,5 относительных единиц соответственно. Частота генерации РДН была достоверно снижена до 28,7±0,5 разрядов в минуту. FETСО2 хотя и несколько уменьшилось по сравнению с 1 минутой – 5,2±0,1 объемных процентов, но оставалось достоверно увеличенным по сравнению с фоновыми значениями (во всех случаях р<0,05). Длительность РДН и уровень системного АД достоверно не изменялись и составили 0,47±0,02 с и 116,2±7,4/69,3±5,1 мм рт. ст. (рис. В).
Через 15 минут после двусторонней микроинъекции кетамина в ПТЯ изменения параметров РДН и FETСО2 стали еще менее выраженными и приблизились к значениям, которые были до воздействия. Однако, амплитуда РДН и время экспираторной фазы оставались достоверно увеличенными и составили 1,37±0,02 с и 18,2±0,5 относительных единиц соответственно. Сохранялось достоверное снижение частоты генерации РДН до 31,8±0,6 разрядов в минуту. FETСО2 также было достоверно повышенным 5,1±0,1 до объемных процентов (во всех случаях р<0,05; рис. Г). Длительность РДН составила 0,46±0,02 с, а уровень системного АД сохранялся в пределах 117,1±8,9 мм рт. ст. и 68,7±6,2 мм рт ст., что достоверно не отличалось от фоновых значений (рис. Г).
Через 30 минут после блокады NMDA-рецепторов нейронов ПТЯ параметры РДН (FETСО2) и АД достоверно не отличались от исходных значений, которые были у крыс до микроинъекции (рис. Д).
Заключение. Результаты исследования показали, что блокада NMDA-рецепторов нейронов ПТЯ после микроинъекции кетамина вызывает достоверное повышение концентрации CO2 в выдыхаемом газе в среднем на 0,5 мм рт. ст. в условиях спонтанного дыхания. Можно предположить, что вследствие этого также достоверно будут повышаться рН и напряжение CO2 в крови и межклеточной жидкости. В то же время центральные хеморецепторы у крыс способны активироваться при уменьшении CO2 в выдыхаемом воздухе уже при концентрациях 0,05-0,1 мм рт. ст. и увеличивать амплитуду и частоту дыхания [8-9]. За счет такой обратной связи поддерживается газовый гомеостаз CO2 крови. В настоящем исследовании у анестезированных спонтанно дышащих крыс FETСО2 и сохранялось постоянным и изменялось в пределах ±0,1 мм рт. ст. в течение десятков минут и часов, пока не уменьшалось действие наркоза. Следовательно, достоверное увеличение FETСО2 более чем на несколько десятых долей мм рт. ст. свидетельствует о нарушении эукапнического газового гомеостаза. Тот факт, что после микроинъекции кетамина в ПТЯ достоверное повышение концентрации CO2 в выдыхаемом газе у крыс происходит в первые минуты и продолжается несколько десятков минут, исключает влияние изменений уровня анестезии, температуры или кровопотери у экспериментального животного. Также отсутствие влияния контрольной микроинъекции изотонического раствора подтверждает, что эффекты изменения газового гомеостаза связаны с блокадой NMDA-рецепторов нейронов ПТЯ. Известен только один глутаматергический вход к ПТЯ от периферических хеморецепторов (каротидных телец) [2]. По данным других исследователей, периферические хеморецепторы могут давать вклад от 10 до 30% в усиление дыхательной реакции на повышение CO2 во вдыхаемом воздухе. В то же время периферические хеморецепторы имеют низкую тоническую активность даже в отсутствие афферентных раздражителей, например таких, как гипоксия или гиперкапния. Можно предположить, что частичное или полное устранение влияния именно этого входа на нейроны ПТЯ вызывает достоверное изменение газового гомеостаза крови. В исследовании на кошках также блокировали NMDA-рецепторы нейронов ПТЯ [10]. Однако, авторы не могли оценить влияние блокады на концентрацию CO2 в выдыхаемом газе, так как опыты проводились на искусственно вентилируемых животных. Таким образом, впервые пока-зано, что нейроны ПТЯ получают глутаматную стимуляцию в отсутствии афферентных раздражителей. Также эндогенный глутамат в ПТЯ через NMDA-рецепторы поддерживает газовый гомеостаз крови на необходимом уровне в эукапнических условиях спонтанного дыхания.
В нашем исследовании также выявлено, что микроинъекция кетамина в ПТЯ вызывает достоверное снижение частоты РДН при незначительном увеличении их амплитуды. В настоящее время остается неизвестным, какими субядрами дыхательного центра генерируется частота, а какими – амплитуда РДН и регуляция их баланса [11]. Среди нейронов ПТЯ наблюдаются большие межиндивидуальные различия в уровне мРНК, которые кодируют нейромедин В, галанин, энкефалин и протонные рецепторы [12]. Эта изменчивость может свидетельствовать о существовании различных функциональных подгрупп нейронов ПТЯ. Возможно, глутаматергический вход к ПТЯ от периферических хеморецепторов активирует подгруппу нейронов, которые увеличивают частоту генерации разрядов РДН и мало влияют на их амплитуду. Частичное или полное выключение этого входа после блокады NMDA-рецепторов ПТЯ в нашем исследовании могло вызывать снижение частоты дыхания. Данное предположение может подтверждать тот факт, что дыхательная реакция при стимуляции периферических хеморецепторов гипоксией у взрослых анестезированных спонтанно дышащих крыс реализуется в основном за счет увеличения частоты [13-15]. После блокады NMDA-рецепторов нейронов ПТЯ мы выявили незначительное увеличение амплитуды РДН. Однако это повышение не компенсировало поддержание CO2 на уровне, которое было до воздействия. Следовательно, эндогенный глутамат в ПТЯ через NMDA-рецепторы регулирует баланс амплитуды и частоты генерации РДН для сохранения гомеостаза CO2 крови.
Конфликт интересов. Авторы заявляют об отсутствии конфликта интересов.
Conflict of interest. The authors declare no conflict of interest.
СПИСОК ЛИТЕРАТУРЫ
- Guyenet, P.G. Central respiratory chemoreception / P.G. Guyenet, D.A. Bayliss // Handbook of Clinical Neurology. – 2022. – № 188. – Р. 37–72.
- Rosin, D.L. Afferent and efferent connections of the rat retrotrapezoid nucleus / D.L. Rosin, D.A. Chang, P.G. Guyene // Journal of Comparative Neurology. – 2006. – Vol. 1. – № 499 (1). – Р. 64–89.
- Ferreira, C.B. Phox2b mutation mediated by Atoh1 expression impaired respiratory rhythm and ventilatory responses to hypoxia and hypercapnia / C.B. Ferreira, T.M. Silva, P.E. Silva // Elife. – 2022. – Vol. 17. – № 11. – P. e73130.
- Interdependent feedback regulation of breathing by the carotid bodies and the retrotrapezoid nucleus / P.G. Guyenet, D.A. Bayliss, R.L. Stornetta [et al] // Journal of Physiology. – 2018. – Vol. 596. – № 15. – Р. 3029–3042.
- Татарников, В.С. Спектральные характеристики активности диафрагмального нерва у взрослых крыс при электрической стимуляции позадитрапециевидного ядра / В.С. Татарников // Бюллетень экспериментальной биологии и медицины. – – Т. 138. – № 8. – P. 139–143.
- Пятин, В.Ф. Роль NMDA и non-NMDA подтипов глутаматных рецепторов нейронных структур зоны А5 в регуляции дыхания и кровообращения при термо-ноцицептивной стимуляции у крыс / В.Ф. Пятин, В.С. Татарников, Е.Н. Глазкова // Бюллетень экспериментальной биологии и медицины. – – Т. 146. – № 5. – С. 551–554.
- Интеграция проприоцептивного и центрального инспираторного тормозных афферентных входов норадренергическими А5 нейронами моста у крыс / В.С. Татарников, И.В. Широлапов, Е.Н. Глазкова, В.Ф. Пятин // Бюллетень экспериментальной биологии и медицины. – – Т. 165. – № 2. – С. 143–147.
- Пятин, В.Ф. Оксид азота модулирует центральный хемочувствительный драйв при участии ростральных вентромедуллярных нейронных структур у взрослых крыс / В.Ф. Пятин, В.С. Татарников // Бюллетень экспериментальной биологии и медицины. – 2003. – Т. 135. – № 5. – С. 489–491.
- Центральный хеморецепторный и барорецепторный контроль А5 норадренергичеких нейронов моста у крыс / В.С. Татарников, И.В. Широлапов, Е.Н. Глазкова, В.Ф. Пятин // Российский физиологический журнал им. И.М. Сеченова. – 2017. – Т. 103. – № 10. – С. 1148–1159.
- Nattie, E.E. Retrotrapezoid nucleus glutamate receptors: control of CO2-sensitive phrenic and sympathetic output / E.E. Nattie, V. Gdovin, A. Li // Journal of Applied Physiology. – 1993. – Vol. 74. – № 6. – Р. 2958–2968.
- Ghali, M.G. Respiratory rhythm generation and pattern formation: oscillators and network mechanisms / M.G. Ghali // Journal of Integrative Neuroscience. – 2019. – Vol. 30. – № 18(4). – Р. 481–517.
- Neuromedin B Expression Defines the Mouse Retrotrapezoid Nucleus / Y. Shi, R.L. Stornetta, D.S. Stornetta [et al] // Journal Neuroscience. – 2017. – Vol. 29. – № 37 (48). – Р. 11744–11757.
- Пятин, В.Ф. Оксид азота в зоне А5 модулирует реакцию на гипоксию дыхательного центра и артериального давления у крыс / В.Ф. Пятин, В.С. Татарников // Бюллетень экспериментальной биологии и медицины. – 2005. – Т. 137. – № 2. – С. 159–162.
- Пятин, В.Ф. Контроль нейронами зоны А5 респираторного и гипотензивного ответов при гипоксическом хеморефлексе у крыс / В.Ф. Пятин, В.С. Татарников, Е.Н. Глазкова // Бюллетень экспериментальной биологии и медицины. – 2006. – Т. 142. – № 12. – С. 607–610.
- Пятин, В.Ф. NMDA-рецепторы зоны А5 участвуют в регуляции артериальног давления и респираторной активности при гипоксии у крыс / В.Ф. Пятин, В.С. Татарников // Бюллетень экспериментальной биологии и медицины. – – Т. 159. – № 4. – С. 406–409.
REFERENCES
- Guyenet P.G., Bayliss D.A. Central respiratory chemoreception. Handbook of Clinical Neurology, 2022, no. 188, pp. 37–72.
- Rosin D.L., Chang D.A., Guyene P.G. Afferent and efferent connections of the rat retrotrapezoid nucleus. Journal of Comparative Neurology, 2006, vol. 1, no. 499 (1), pp. 64–89.
- Ferreira C.B., Silva T.M., Silva P.E. Phox2b mutation mediated by Atoh1 expression impaired respiratory rhythm and ventilatory responses to hypoxia and hypercapnia. Elife, 2022, vol. 17, no. 11, p. e73130.DOI: 10.7554/eLife.73130.
- Guyenet P.G., Bayliss D.A., Stornetta R.L., Kanbar R., Shi Y., Holloway B.B., Souza G.M.P.R., Basting T.M., Abbott S.B.G., Wenker I.C. Interdependent feedback regulation of breathing by the carotid bodies and the retrotrapezoid nucleus. Journal of Physiology, 2018, vol. 596, no. 15, pp. 3029–3042.
- Tatarnikov V.S. Spectral characteristics of the diaphragmatic nerve activity in adult rats during electrical stimulation of the posaditrapecies nucleus. Bulletin of Experimental Biology and Medicine, 2004, vol. 138, no. 8, pp. 139–143. (in Russ.)
- Pyatin V.F., Tatarnikov V.S., Glazkova E.N. The role of NMDA and non-NMDA subtypes of glutamate receptors of neural structures of zone A5 in the regulation of respiration and blood circulation during thermo-nociceptive stimulation in rats. Bulletin of Experimental Biology and Medicine, 2008, vol. 146, no. 5, pp. 551–554. (in Russ.)
- Tarnikov V.S., Shirolapov I.V., Glazkova E.N., Pyatin V.F. Integration of proprioceptive and central inspiratory inhibitory enzyme inputs by A5 noradrenergic neurons in rats. Bulletin of Experimental Biology and Medicine, 2018, vol. 165, no. 2, pp. 143–147. (in Russ.)
- Pyatin V.F., Tatarnikov V.S. Nitric oxide modulates the central chemosensitive drive with the participation of rostral ventromedullary neural structures in adult rats. Bulletin of Experimental Biology and Medicine, 2003, vol. 135, no. 5, pp. 489–491. (in Russ.)
- Tatarnikov V.S., Shirolapov I.V., Glazkova E.N., Pyatin V.F. Central chemoreceptor and baroreceptor control of the A5 pontine noradrenergic neurons in rats. Russian Journal of Physiology, 2017, vol. 103, no. 10, pp. 1148–1159. (in Russ.)
- Nattie E.E., Gdovin V., Li A. Retrotrapezoid nucleus glutamate receptors: control of CO2-sensitive phrenic and sympathetic output. Journal of Applied Physiology, 1993, vol. 74, no. 6, pp. 2958–2968.
- Ghali M.G. Respiratory rhythm generation and pattern formation: oscillators and network mechanisms. Journal of Integrative Neuroscience, 2019, vol. 30, no. 18 (4), pp. 481–517.
- Shi Y., Stornetta R.L., Stornetta D.S., Onengut-Gumuscu S., Farber E.A., Turner S.D., Guyenet P.G., Bayliss D.A. Neuromedin B. Expression Defines the Mouse Retrotrapezoid Nucleus. Journal Neuroscience, 2017, vol. 29, no. 37 (48), pp. 11744–11757.
- Pyatin V.F., Tatarnikov V.S. Nitric oxide in A5 zone modulates response to hypoxia of the respiratory center and blood pressure in rats. Bulletin of Experimental Biology and Medicine, 2005, vol. 137, no. 2, pp. 159–162. (in Russ.)
- Pyatin V.F., Tatarnikov V.S., Glazkova E.N. Control by zone A5 neurons of respiratory and hypotensive responses in hypoxic chemoreflex in rats. Bulletin of Experimental Biology and Medicine, 2006, vol. 142, no. 12, pp. 607–610. (in Russ.)
- Pyatin V.F., Tatarnikov V.S. NMDA receptors of A5 zone are involved in the regulation of arterial pressure and respiratory activity in hypoxia in rats. Bulletin of Experimental Biology and Medicine, 2015, vol. 159, no. 4, pp. 406–409. (in Russ.)
СВЕДЕНИЯ ОБ АВТОРАХ:
Елена Николаевна Глазкова – кандидат биологических наук, доцент, доцент кафедры физиологии, ФГБОУ ВО «Самарский государственный медицинский университет» Минздрава России, Самара, e-mail: Адрес электронной почты защищен от спам-ботов. Для просмотра адреса в вашем браузере должен быть включен Javascript..
Оксана Вячеславовна Борисова – кандидат биологических наук, доцент кафедры физиологии, ФГБОУ ВО «Самарский государственный медицинский университет» Минздрава России, Самара, e-mail: Адрес электронной почты защищен от спам-ботов. Для просмотра адреса в вашем браузере должен быть включен Javascript.
Ольга Геннадьевна Кузнецова – старший преподаватель кафедры физиологии, ФГБОУ ВО «Самарский государственный медицинский университет» Минздрава России, Самара, e-mail: Адрес электронной почты защищен от спам-ботов. Для просмотра адреса в вашем браузере должен быть включен Javascript.
Валерий Станиславович Татарников – директор ООО «Техсервис», Самара, e-mail: Адрес электронной почты защищен от спам-ботов. Для просмотра адреса в вашем браузере должен быть включен Javascript.
INFORMATION ABOUT THE AUTHORS:
Elena N. Glazkova – Candidate of Biological Sciences, Associate Professor of the Department of Physiology, Samara State Medical University of the Russian Ministry of Health, Samara, e-mail: Адрес электронной почты защищен от спам-ботов. Для просмотра адреса в вашем браузере должен быть включен Javascript..
Oksana V. Borisova – Candidate of Biological Sciences, Associate Professor of the Department of Physiology, Samara State Medical University, Samara, e-mail: Адрес электронной почты защищен от спам-ботов. Для просмотра адреса в вашем браузере должен быть включен Javascript.
Olga G. Kuznetsova – Assistant of the Department of Physiology, Samara State Medical University, Samara, e-mail: Адрес электронной почты защищен от спам-ботов. Для просмотра адреса в вашем браузере должен быть включен Javascript.
Valerij S. Tatarnikov – Director, Techservice LLC, Samara, e-mail: Адрес электронной почты защищен от спам-ботов. Для просмотра адреса в вашем браузере должен быть включен Javascript.
Для цитирования: Респираторный и гомеостатический эффект блокады NMDA-рецепторов нейронов позадитрапециевидного ядра у взрослых анестезированных спонтанно дышащих крыс / Е.Н. Глазкова, О.в. Борисова, О.Г. Кузнецова, В.С. Татарников // Современные вопросы биомедицины. – 2025. – Т. 9. – № 1(31). DOI: 10.24412/2588-0500-2025_09_01_3
For citation: Glazkova E.N., Borisova O.V., Kuznetsova O.G., Tatarnikov V.S. Respiratory and homeostatic effect of blockade of NMDA receptors in retrotrapezoid nucleus neurons in adult anesthetized spontaneously breathing rats. Modern Issues of Biomedicine, 2025, vol. 9, no. 1(31). DOI: 10.24412/2588-0500-2025_09_01_3