

Дата публикации: 01.06.2025
DOI: 10.24412/2588-0500-2025_09_02_1
УДК 612.82
РОЛЬ ЦЕНТРАЛЬНОГО ЯДРА МИНДАЛЕВИДНОГО КОМПЛЕКСА В ФОРМИРОВАНИИ ПОВЕДЕНЧЕСКИХ ПАТТЕРНОВ У САМОК КРЫС В СОСТОЯНИИ ПОКОЯ И ПРИ ХРОНИЧЕСКОМ СТРЕССЕ
Е.И. Бакулина, А.Д. Юданова, И.Д. Романова, Е.С. Бикбау
Федеральное государственное автономное образовательное учреждение высшего образования «Самарский национальный исследовательский университет имени академика С.П. Королева», г. Самара, Россия
Аннотация. Исследование роли центрального ядра миндалины у белых самок крыс было направлено на анализ процесса формирования поведенческих реакций до и после нахождения в условиях хронического непредсказуемого стресса. В данном эксперименте была использована эффективная и апробированная методика хронического мягкого стресса. Исследование состояло из 2-х фаз: первая включала хирургическое разрушение исследуемой структуры, первоначальное тестирование животных и сбор проб крови, вторая заключалась в воспроизведении экспериментальной стресс-модели, повторном тестировании поведения и заборе проб. Интактные крысы демонстрировали повышенную тревожность, а экспериментальные – низкую в покое. После воздействия стресса у интактных животных уровень тревожности не изменяется, напротив, экспериментальные крысы проявляют высокий уровень тревожности.
Ключевые слова: центральное ядро миндалевидного комплекса, хронический стресс, черно-белая камера, открытое поле.
THE ROLE OF THE CENTRAL NUCLEUS OF THE AMYGDALA IN THE FORMATION OF BEHAVIORAL PATTERNS IN FEMALE RATS AT REST AND UNDER CHRONIC STRESS
E.I. Bakulina, A.D. Yudanova, I.D. Romanova, E.S. Bikbau
Samara National Research University, Samara, Russia
Abstract. The role of the central nucleus of the amygdala in the formation of behavioral patterns was studied in white outbred female rats before and after exposure to chronic stress. In the experiment, an effective and proven method of chronic mild stress was applied. The study was carried out in two stages: the first was a central amygdalectomy, preliminary behavioral testing and blood sampling to assess the severity of the stress reaction; the second was a simulation of chronic stress, repeated behavioral testing and blood sampling. The control group shows an average degree of anxiety at rest, while the experimental group shows a low degree of anxiety. After stress, the anxiety level in intact animals does not change, on the contrary, experimental rats exhibit a high level of anxiety.
Keywords: central nucleus of the amygdala, chronic stress, light-dark box, open field.
Введение. В течение всего жизненного цикла организм в той или иной степени подвергается всевозможным стрессовым факторам, последствия которых глубоко и часто негативно влияют на его физиологию. Это может привести к развитию разнообразных заболеваний: от нарушений в головном мозге до неврозов и патологии сердечно-сосудистой системы [1, 2].
Центральное ядро миндалины (Се МК) в тесной взаимосвязи с ядром ложа конечной полоски (BNST) выполняет основополагающую функцию контроля и регуляции эмоциональных аспектов поведения. Это прямое взаимодействие обеспечивает комплексную регуляторную роль. Исследовательское сообщество выделяет Се МК как центральный элемент обработки страха, а для BNST характерна ключевая роль в формировании тревожных состояний. Но некоторые ранее полученные результаты зарубежных исследований с задействованием эксайтотоксических поражений отражают также участие Се МК в формировании вызванных стрессом тревожных состояний. Ученые отмечают важность экспрессирующегося в Се МК кортикотропин-рилизинг-фактора (CRF) в качестве анксиогенного компонента, занимающего центральное место в развитии тревожных расстройств. Так, в 2020 году группа иностранных ученых смогла зафиксировать снижение выраженности экспрессии рецепторов CRF в BNST (которые были индуцированы стрессом) при блокировании CRF в Се МК [3].
Цель работы: изучение влияния Се МК на поведенческие паттерны в условиях длительного воздействия стресса.
Методы и организация исследования. Все процедуры проводились в соответствии с этическими стандартами, утвержденными законодательством Российской Федерации (правовыми актами РФ), принципами Базельской декларации и рекомендациями комитета по биоэтике биологического факультета Самарского национального исследовательского университета имени академика С.П. Королева. Эксперимент выполнен на 12 половозрелых (стадия диэструса исключает гормональное воздействие, беременность исключена) беспородных самках крыс массой 250-300 г (разведены в виварии ФГАОУ ВО Самарского национального исследовательского университета имени академика С.П. Королева). Животные, задействованные в эксперименте, содержались в стандартных условиях вивария со свободным доступом к воде и пище.
На первом этапе эксперимента животных экспериментальной группы подвергали классической [4] процедуре амигдалоэктомии – локальному электролитическому разрушению Се МК 10-секундным воздействием анодным током силой 0,1 ампера (активный электрод). Интактным самкам из контрольной группы этот электрод внедряли без действия тока. На ухе самок крепился индифферентный электрод при проведении тока. Все самки, подвергшиеся хирургическому вмешательству, были обеспечены всеми необходимыми анти- и асептическими процедурами во избежание возникновения инфекционных осложнений. По завершении полного восстановления от операционных манипуляций все самки подвергались забору периферической и венозной крови. Образцы крови были взяты для осуществления последующих лабораторных исследований, позволяющих оценить проявившиеся в организме физиологические изменения. Дополнительно самки прошли серию поведенческих тестов в специализированном оборудовании с целью оценки различных аспектов их поведения и реакций. На втором этапе эксперимента было осуществлено моделирование хронического стресса, что позволило создать максимально приближенные к реальным стрессовым ситуациям условия. После моделирования хронического стресса были повторно проведены заборы крови и поведенческие тесты.
В данном эксперименте была использована эффективная и апробированная методика хронического мягкого стресса (ХМС) [6]. Моделирование ХМС (рис. 1) осуществлялось в течение двух недель с воздействием разнообразных стрессоров, с учетом обязательного условия непредсказуемости и нерегулярности последовательности стрессогенных факторов. Важно отметить, что интенсивность применяемых стрессоров (использовали слабые) была специально подобрана для обеспечения мягкого, но хронического воздействия, чтобы избежать сильного физиологического повреждения животных.
В исследовании применялась специальная экспериментальная тестовая установка «темно-светлая камера», используемая для анализа реакции грызунов на различные уровни стресса при наличии возможности выбора между разными по комфорту условиями. Записывались временные (латентный период входа в темную секцию, продолжительность пребывания в темной и светлой секциях тестовой установки) и количественные поведенческие эффекты (количество перемещений между светлыми и темными участками камеры и количество оценок «риска» – высовывания/ неполных выходов из темной секции камеры в светлую). Использовалась установка «открытое поле», круглое, предназначенная для регистрации целого комплекса поведенческих компонентов в новых (стрессогенных) условиях: временных (время нахождения в центральных и пристеночных сегментах – степень эмоционального напряжения) и количественных поведенческих эффектов (число пересеченных квадратов – горизонтальная двигательная активность, количество вертикальных стоек – вертикальная двигательная активность, а также груминговые реакции).
Выраженность реакции на стресс определяли по лейкоцитарной формуле и уровню адренокортикотропного гормона (АКТГ) в плазме крови. Лейкоцитарная формула (200 клеток с расчетом соотношения различных форм) была рассчитана в результате микроскопирования мазков крови (нативная окрашенная по методу Романовского-Гимзы кровь из кончика хвоста) с иммерсией [7]. Для определения уровня АКТГ забор крови производили из подъязычной вены в вакуумные пробирки, содержащие антикоагулянт EDTA-R2, с предварительной наркотизацией животного диэтиловым эфиром. Иммунохимический анализ крови проводили с использованием анализатора Siemens Immulite 2000XPi.
Статистический анализ собранных данных был выполнен с использованием программы SigmaPlot 12.5 компании SYSTAT Software. Результаты с p<0,05 были признаны статистически значимыми. Для оценки нормальности распределения в выборках использовался тест Шапиро-Уилка, а для определения однородности распределения применялся тест Левена. В процессе статистического анализа проводились парный и независимый t-тесты, тест Манна-Уитни, а также тест «до и после» для сравнительного анализа выборок. Информация представлена в виде средних значений с учетом стандартного отклонения.
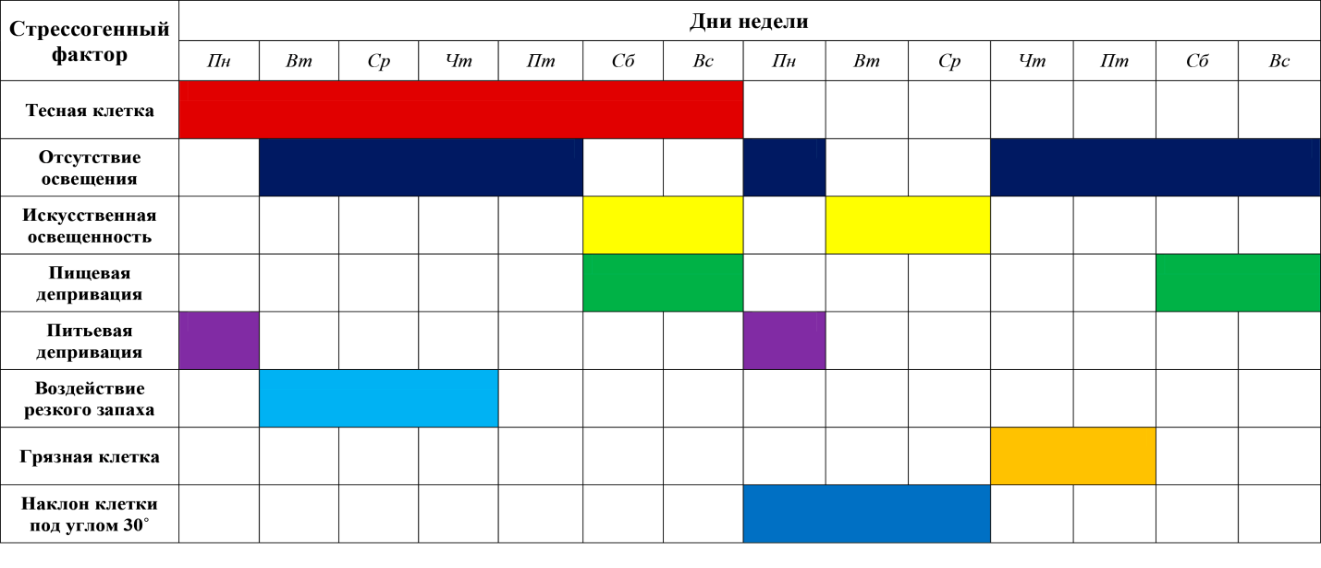
Рис. 1. Схема хронического мягкого стресса, визуализирующая последовательность применения стрессоров
Результаты исследования и их обсуждение. В процессе исследования поведенческих паттернов до ХМС в тестовой установке «темно-светлая камера» крысы экспериментальной группы (ЭГ) демонстрировали высокий латентный период входа в темную секцию по сравнению с самками контрольной группы (КГ). Так же в ЭГ уменьшилось время пребывания в состоянии покоя внутри темного отсека, но при этом увеличилось время пребывания в светлом пространстве установки. Интактные животные показывали большее время пребывания в темной части и меньшее – в освещенном отсеке (рис. 2). Крысы экспериментальной группы продемонстрировали большое количество перемещений между светлыми разделенными зонами камеры, однако количество оценок «риска» больше у интактных животных (рис. 3).
После ХМС у крыс ЭГ сократился латентный период входа в темную секцию, и увеличилась продолжительность пребывания в ней. В КГ животных общая продолжительность нахождения в светлой секции выше по сравнению с экспериментальными животными. Для обеих групп отмечено сокращение времени во внешнем освещенном пространстве тестовой установки после ХМС (по отношению к показателям до него). Еще у крыс ЭГ снизилось количество перемещений между зонами камеры. Однако возросло число оценок «риска» по сравнению с данными до моделирования стресса (рис. 3).
До моделирования ХМС интактные крысы проявляют высокую тревожность, предпочитая большее время проводить в темной секции тестовой установки, и имеют значительное количество оценок «риска». В то время как крысы с разрушенным Се МК больше предпочитают светлую секцию и демонстрируют высокий латентный период входа в темную секцию, что указывает на низкую тревожность. Поведение крыс ЭГ характеризовалось высокой активностью, проявляющейся в большом количестве перемещений между светлыми и темными участками, что отражает превалирование исследовательской активности над страхом. На основе наблюдаемых данных можно сделать вывод, что разрушение Се МК приводит к значительному снижению выраженности тревожного поведения у крыс. Это подтверждается изменением предпочтений в выборе светлых или темных зон, увеличением латентного периода входа в темную секцию и снижением частоты оценок «риска».
При этом активность животных остается высокой, что указывает на активацию исследовательского поведения.
Полученные в нашем исследовании данные схожи с результатами, полученными Ana P. Ventura-Silva с соавторами, которые показали ослабление стрессового тревожного поведения крыс при эксайтотоксическом поражении Се МК. Основываясь на полученных данных, исследователи пришли к выводу, что целостность Се МК имеет значение для развития повышенного беспокойства, связанного со стрессом. Однако эта структура не оказывает непосредственного влияния на проявления тревожного поведения сама по себе [8].
В тестовой установке «открытое поле», круглое, до ХМС количество пересеченных сегментов выше у экспериментальных крыс (рис. 5). А вот после ХМС у них снизилось общее время нахождения в центральных сегментах тестовой установки и прямо пропорционально повысилось время в пристеночных. Соответственно, общее время пребывания в центральных сегментах тестовой установки после хронического стресса выше у крыс ЭГ, чем у КГ. У ЭГ выше общее время пребывания в пристеночных сегментах установки (рис. 4). Так же у этих крыс снизилось количество пересеченных квадратов после моделирования ХМС по сравнению с этим показателем до ХМС, но при этом оно меньше, чем у интактных крыс (рис. 5).
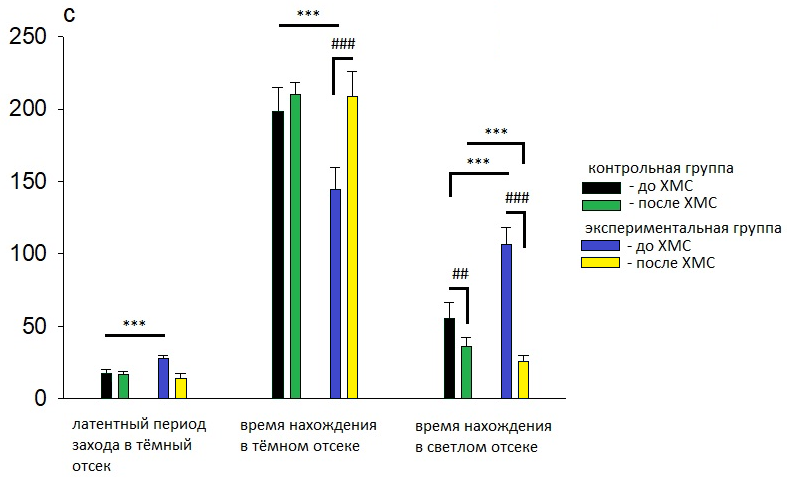
Рис. 2. Временные поведенческие эффекты до и после ХМС в экспериментальной тестовой установке «Темно-светлая камера»:
Примечание: ХМС – хронический мягкий стресс; *** – p<0,005 (между исследуемыми группами); ## – p<0,01; ### – p<0,005 (внутри исследуемых групп до и после ХМС).
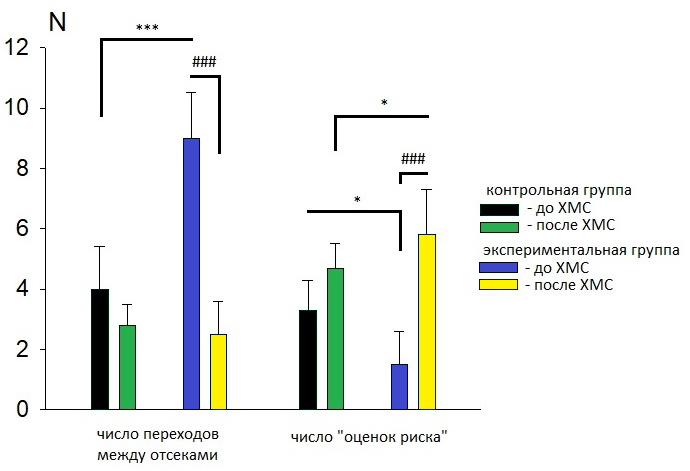
Рис. 3. Количественные поведенческие эффекты до и после ХМС в экспериментальной тестовой установке «Темно-светлая камера»
Примечание: ХМС – хронический мягкий стресс; * – p<0,05; *** – p<0,005 (между исследуемыми группами); ### – p<0,005 (внутри исследуемых групп до и после ХМС).
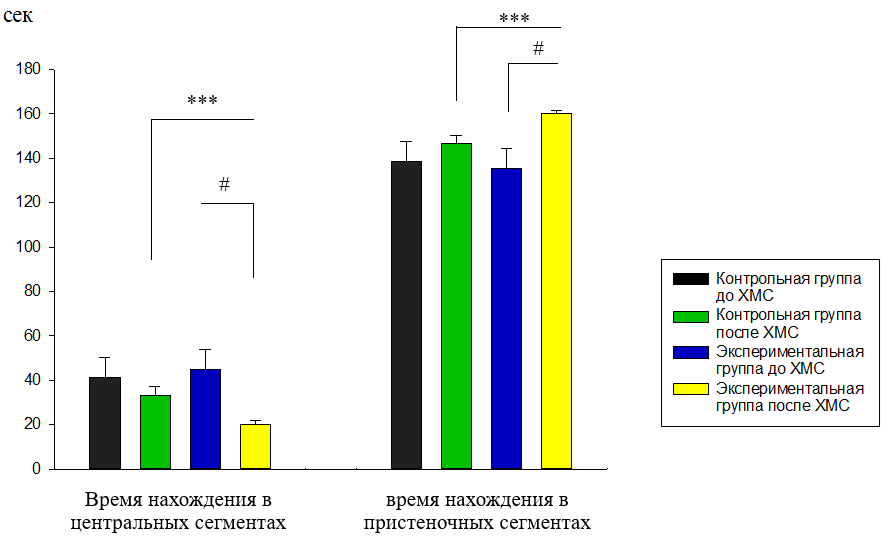
Рис. 4. Временные поведенческие эффекты в состоянии покоя и после ХМС в тесте «открытое поле», круглое
Примечание: ХМС – хронический мягкий стресс; *** – p<0,005 (между исследуемыми группами); # – p<0,05 (внутри исследуемых групп до и после ХМС).
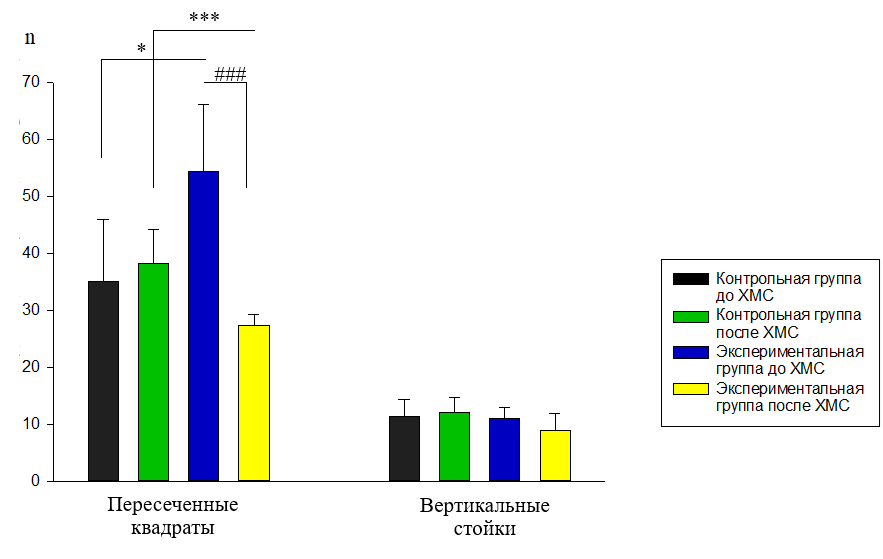
Рис. 5. Количественные поведенческие эффекты в состоянии покоя и после ХМС в тесте «открытое поле», круглое
Примечание: ХМС – хронический мягкий стресс; * – p<0,05; *** – p<0,005 (между исследуемыми группами); ### – p<0,005 (внутри исследуемых групп до и после ХМС).
До ХМС у крыс ЭГ двигательная и исследовательская активность выше, чем у интактных животных, на основании большего количества пересеченных отсеков у крыс с разрушенным Се МК. После моделирования ХМС у крыс с разрушенным Се МК повышается степень эмоциональной напряженности, так как животные предпочитают больше времени проводить в пристеночных сегментах установки. Напротив, крысы КГ больше времени проводят в центральных отсеках, что демонстрирует низкую степень тревожности после ХМС по сравнению с экспериментальной. Также у крыс ЭГ снижается двигательная и исследовательская активность по сравнению с покоем и с показателями в КГ после ХМС. Исходя из этого, можно говорить о высокой степени тревожности и эмоциональной напряженности амигдалоэктомированных животных после воздействия хронического стресса по сравнению с интактными животными.
Частично данные схожи с результатами исследований Ворвуль с соавторами. Они показали, что хронический иммобилизационный стресс вызывает снижение двигательной и исследовательской активности на фоне повышения тревожности у крыс [9]. Так же в исследовании поведения крыс до и после стресса Леушкина с соавторами выявлено, что до воздействия акусти-ческого стресса наблюдается бурная двигательная активность, сопровождаемая ярко выраженной исследовательской деятельностью. Однако после воздействия акустического стресса активность и исследовательский интерес крыс снижаются, и животные предпочитают периферические зоны экспериментальной установки, избегая центрального пространства [10].
При исследовании изменений уровня АКТГ в плазме крови до ХМС не было установлено статистически значимых различий между группами. После стресса у крыс ЭГ наблюдается резкое повышение уровня АКТГ как внутри ЭГ, так и по сравнению с КГ (рис. 6). Это повышение показывает реализацию стресс-реакции у экспериментальных крыс по сравнению с интактными и отсутствием стресса до моделирования ХМС в ЭГ. Так как стресс-синдром в значительной степени зависит от функционирования гипоталамо-гипофизарно-надпочечниковой системы, при воздействии стрессора наблюдается резкое увеличение секреции кортиколиберина нейронами гипоталамуса. Этот гормон активирует высвобождение АКТГ из аденогипофиза, который, в свою очередь, стимулирует выработку глюкокортикоидов [11].
Так же о выраженности стресса у амигдалоэктомированных животных по сравнению с интактными свидетельствуют резкое падение количества эозинофилов и возрастание процентного содержания лимфоцитов в периферической крови (рис. 7) после воздействия хронического стресса.
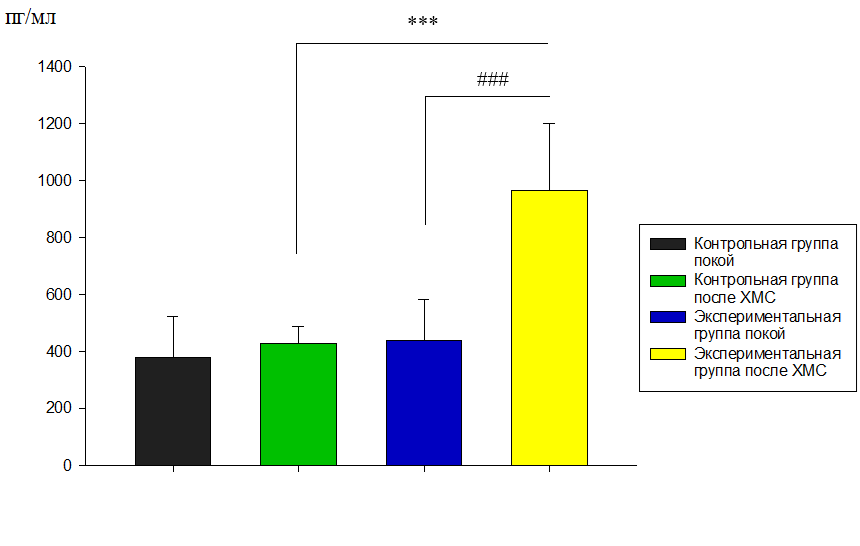
Рис. 6. Уровень адренокортикотропного гормона (АКТГ) в плазме крови у контрольной и экспериментальной групп крыс до и после ХМС
Примечание: ХМС – хронический мягкий стресс; *** – p<0,005 (между исследуемыми группами); ### – p<0,005 (внутри исследуемых групп до и после ХМС).
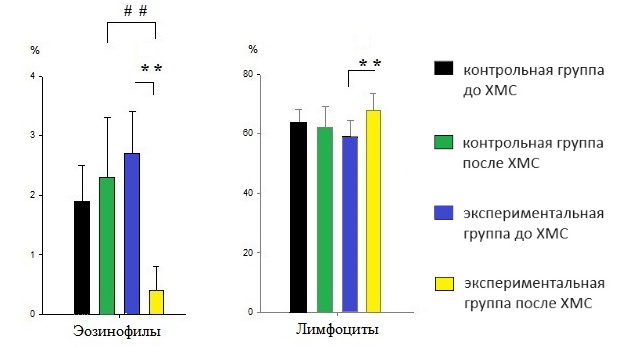
Рис. 7. Процентное содержание эозинофилов и лимфоцитов в периферической крови
Примечание: ХМС – хронический мягкий стресс; ** – p<0,01 (между исследуемыми группами); ## p<0,01 (внутри исследуемых групп до и после ХМС).
Заключение. Интактные крысы в условиях покоя демонстрируют повышенную тревожность. Крысы же с удаленным Се МК проявляют низкую тревожность с явным доминированием над страхом исследовательской деятельности. Это свидетельствует о том, что амигдалоэктомия влечет за собой заметное ослабление тревожного поведения.
При длительном стрессе у неоперированных крыс уровень тревоги стабилен, в то время как амигдалоэктомированные особи демонстрируют резко повышенную тревожность по сравнению с покоем и тревожностью после ХМС у неоперированных сородичей. Это явление указывает на устойчивую и затяжную стрессовую реакцию в данной группе животных, что дополнительно подтверждается снижением эозинофильных клеток крови при увеличении лимфоцитов и высоком уровне АКТГ в их плазме. Тогда как крысы с целостным Се МК частично адаптировались к стрессовой ситуации. Об этом можно говорить, поскольку уровень тревожности, качественный состав крови и уровень АКТГ в плазме крови у контрольных животных не изменились. В отличие от них интактные крысы частично адаптировались к стрессовым условиям: уровень тревожности остается неизменным, как и состав крови с уровнем АКТГ. Это свидетельствует о более успешной регуляции реакций на стресс у интактных особей по сравнению с их амигдалоэктомированными сородичами.
Конфликт интересов. Авторы заявили об отсутствии конфликта интересов.
Conflict of interest. The authors declare no conflict of interest.
СПИСОК ЛИТЕРАТУРЫ
- McEwen, B.S. Stress effects on neuronal structure: hippocampus, amygdala, and prefrontal cortex / B.S. McEwen, C. Nasca, J.D. Gray // Neuropsychopharmacology. – 2016. – No. 1(41). – P. 3-23.
- Herman, J.P. Neural control of chronic stress adaptation / J.P. Herman // Front Behav Neurosci. – 2013. – No. 7. – P. 61-67.
- Amygdalar corticotropin-releasing factor mediates stress-induced anxiety / A.P. Ventura-Silva, S. Borges [et al.] // Brain Re. – 2020. – No. 1729. – 17 p.
- Буреш, Я. Методики и основные эксперименты по изучению мозга и поведения / Я.Буреш, О. Бурешова, Д.П. Хьюстон. – М.: Высшая школа, 1991. – 399 с.
- Paxinos, G. The Rat Brain in Stereotaxis Coordinates / G. Paxinos, C. Watson. – Watson: Academic Press, 1998. – 474 p.
- Stress-Induced Morphological, Cellular and Molecular Changes in the Brain-Lessons Learned from the Chronic Mild Stress Model of Depression / A.R. Khan, L. Geiger, O. Wiborg, B. Czéh // Cells. – 2020. – No. 9. – 1026 p.
- Практикум по клинической диагностике с рентгенологией / Е.С. Воронин, С.П. Ковалев, Г.В. Сноз [и др.]. – М.: Инфра-м, 2014. – 336 с.
- Excitotoxic lesions in the central nucleus of the amygdala attenuate stress-induced anxiety behavior / A.P. Ventura-Silva, A. Melo, A.C. Ferreira [et al.] // Front Behav Neurosci. – 2013. – No. 7(32). – 7 p.
- Пептид АКТГ4-7-PGP корригирует поведение и уровень кортикостерона у крыс в условиях хронического стресса / А.О. Ворвуль, И.И. Бобынцев, М.В. Свищева [и др.] // Российский физиологический журнал им. И.М. Сеченова. – 2021. – Т. 107. – № 11. – С.1359-1371.
- Анализ поведения и содержания катехоламинов мозга до и после стресса у крыс с генотипом А1/А1 по локусу Taq1А Д2 рецептора / Н.Ф. Леушкина, А.М. Федорова, Л.Б. Калимуллина, А.В. Ахмадеев // Фундаментальные исследования. – 2013. – № 8-4. – С. 896-899.
- Селье, Г. Очерки об адаптационном синдроме / Г. Селье. – М.: Медгиз, 1960. – 254 с.
REFERENCES
- McEwen B.S., Nasca C., Gray J.D. Stress effects on neuronal structure: hippocampus, amygdala, and prefrontal cortex. Neuropsychopharmacology. 2016, no. 1(41), pp. 3-23.
- Herman J.P. Neural control of chronic stress adaptation. Front Behav Neurosci. 2013, no. 7, pp. 61-67.
- Ventura-Silva A.P., Borges S., Sousa N., Rodrigues A.J., Pêgo J.M. Amygdalar corticotropin-releasing factor mediates stress-induced anxiety. Brain Re. 2020, no. 1729, 17 p.
- Buresh Ya., Bureshova O., Houston D.P. Methods and basic experiments on the study of the brain and behavior. Moscow: Higher School Publ, 1991. 399 p. (in Russ.)
- Paxinos G., Watson C. The Rat Brain in Stereotaxis Coordinates. Watson: Academic Press, 1998, 474 p.
- Khan A.R., Geiger L., Wiborg O., Czéh B. Stress-Induced Morphological, Cellular and Molecular Changes in the Brain-Lessons Learned from the Chronic Mild Stress Model of Depression. Cells. 2020, no. 9, 1026 p.
- Voronin E.S., Kovalev S.P., Snoz G.V., Cherkasova V.I., Shabanov A.M., Shchukin M.V. Practicum on clinical diagnostics with radiology. Moscow: Infra-m, 2014, 336 p. (in Russ.)
- Ventura-Silva A.P., Melo A., Ferreira A.C., Carvalho M.M., Campos F.L., Sousa N., Pêgo J.M. Excitotoxic lesions in the central nucleus of the amygdala attenuate stress-induced anxiety behavior. Front Behav Neurosci. 2013, vol. 7, no. 32, 7 p.
- Vorvul A.O., Bobyntsev I.I., Svishcheva M.V., Medvedeva O.A., Mukhina A.Yu., Andreeva L.A. The peptide ACTH4-7-PGP corrects the behavior and level of corticosterone in rats under chronic stress. I.M. Sechenov Russian Journal of Physiology. 2021, vol. 107, no. 11, pp. 1359-1371. (in Russ.)
- Leushkina N.F., Fedorova A.M., Kalimullina L.B., Akhmadeev A.V. Analysis of the behavior and content of brain catecholamines before and after stress in rats with A1/A1 genotype at the Taq1A D2 receptor locus. Fundamental research. 2013, no. 8-4, pp. 896-899. (in Russ.)
- Selye G. Essays on the adaptation syndrome. Moscow: Medgiz Publ, 1960. 254 p. (in Russ.)
СВЕДЕНИЯ ОБ АВТОРАХ:
Екатерина Ивановна Бакулина – аспирант, ФГАОУ ВО «Самарский национальный исследовательский университет имени академика С.П. Королева», Самара, e-mail: Адрес электронной почты защищен от спам-ботов. Для просмотра адреса в вашем браузере должен быть включен Javascript..
Анастасия Дмитриевна Юданова – аспирант, ФГАОУ ВО «Самарский национальный исследовательский университет имени академика С.П. Королева», Самара, e-mail: Адрес электронной почты защищен от спам-ботов. Для просмотра адреса в вашем браузере должен быть включен Javascript..
Ирина Дмитриевна Романова – кандидат биологических наук, доцент, декан биологического факультета, ФГАОУ ВО «Самарский национальный исследовательский университет имени академика С.П. Королева», Самара, e-mail: Адрес электронной почты защищен от спам-ботов. Для просмотра адреса в вашем браузере должен быть включен Javascript..
Ержан Сафеевич Бикбау – аспирант, ФГАОУ ВО «Самарский национальный исследовательский университет имени академика С.П. Королева», Самара, e-mail: Адрес электронной почты защищен от спам-ботов. Для просмотра адреса в вашем браузере должен быть включен Javascript..
INFORMATION ABOUT THE AUTHORS:
Ekaterina I. Bakulina – Post-Graduate Student, Samara National Research University, Samara, e-mail: Адрес электронной почты защищен от спам-ботов. Для просмотра адреса в вашем браузере должен быть включен Javascript..
Anastasia D. Yudanova – Post-Graduate Student, Samara National Research University, Samara, e-mail: Адрес электронной почты защищен от спам-ботов. Для просмотра адреса в вашем браузере должен быть включен Javascript..
Irina D. Romanova – Candidate of Biological Sciences, Associate Professor, Samara National Research University, Samara, e-mail: Адрес электронной почты защищен от спам-ботов. Для просмотра адреса в вашем браузере должен быть включен Javascript..
Erzhan S. Bikbau – Post-Graduate Student, Samara National Research University, Samara, e-mail: Адрес электронной почты защищен от спам-ботов. Для просмотра адреса в вашем браузере должен быть включен Javascript..
Для цитирования: Роль центрального ядра миндалевидного комплекса в формировании поведенческих паттернов у самок крыс в состоянии покоя и при хроническом стрессе / Е.И. Бакулина, А.Д. Юданова, И.Д. Романова, Е.С. Бикбау // Современные вопросы биомедицины. – 2025. – Т. 9. – № 2(32). DOI: 10.24412/2588-0500-2025_09_02_1
For citation: Bakulina E.I., Yudanova A.D., Romanova I.D., Bikbau E.S. The role of the central nucleus of the amygdala in the formation of behavioral patterns in female rats at rest and under chronic stress. Modern Issues of Biomedicine, 2025, vol. 9, no. 2(32). DOI: 10.24412/2588-0500-2025_09_02_1