

Дата публикации: 01.09.2025
DOI: 10.24412/2588-0500-2025_09_03_5
УДК 612
УЧАСТИЕ ХОЛИНЕРГИЧЕСКИХ И НИТРЕРГИЧЕСКИХ МЕХАНИЗМОВ В РЕАЛИЗАЦИИ ЭФФЕКТОВ γ-АМИНОМАСЛЯНОЙ КИСЛОТЫ НА ПЕРИОДИЧЕСКУЮ ЭЛЕКТРИЧЕСКУЮ АКТИВНОСТЬ ТОНКОЙ КИШКИ
Ю.В. Гурман1, Н.С. Тропская1,2
1Государственное бюджетное учреждение здравоохранения города Москвы «Научно-исследовательский институт скорой помощи им. Н.В. Склифосовского Департамента здравоохранения города Москвы», г. Москва, Россия
2Федеральное государственное бюджетное образовательное учреждение высшего образования «Московский авиационный институт (национальный исследовательский университет)», г. Москва, Россия
Аннотация. Введение. Существующие данные о влиянии γ-аминомасляной кислоты на моторику тонкой кишки не позволяют судить об изменении периодической электрической активности тонкой кишки. Методы. В экспериментах на здоровых крысах (n=21) с имплантированными в тощую кишку электродами после 18-часовой пищевой депривации изучали изменения периодической электрической активности тонкой кишки как после однократного энтерального введения γ-аминомасляной кислоты (70 мг/кг), так и после введения на фоне атропина (1 мг/кг) и нитроглицерина (0,8 мг/кг). Результаты. В зависимости от предшествующего воздействия (на фоне атропина либо нитроглицерина) введение γ-аминомасляной кислоты приводило к стимуляции или подавлению различных паттернов периодической межпищеварительной электрической активности тонкой кишки. Заключение. Модулирующее влияние γ-аминомасляной кислоты на межпищеварительную периодическую электрическую активность тонкой кишки связано с воздействием на холинергические и нитрергические пути.
Ключевые слова: γ-аминомасляная кислота, мигрирующий миоэлектрический комплекс, холинергические механизмы, нитрергические механизмы, крысы.
INVOLVEMENT OF CHOLINERGIC AND NITRERGIC PATHWAYS IN THE EFFECTS OF γ-AMINOBUTYRIC ACID ON PERIODIC ELECTRICAL ACTIVITY OF THE SMALL INTESTINE
Yu.V. Gurman1, N.S. Tropskaya1,2
1N.V. Sklifosovsky Research Institute for Emergency Medicine, Moscow, Russia
2Moscow Aviation Institute (National Research University), Moscow, Russia
Abstract. Introduction. The existing data on the effect of γ-aminobutyric acid on small intestinal motility do not allow us to judge the changes in the periodic electrical activity of the small intestine. Methods. In experiments on healthy rats (n=21) with electrodes implanted in the jejunum after 18 hours of food deprivation, changes in the periodic electrical activity of the small intestine were studied both after a single enteral administration of γ-aminobutyric acid (70 mg/kg) and after administration against the background of atropine (1 mg/kg) and nitroglycerin (0.8 mg/kg). Results. Depending on the previous exposure (against the background of atropine or nitroglycerin), the administration of γ-aminobutyric acid led to stimulation or suppression of various patterns of periodic interdigestive electrical activity of the small intestine. Conclusion. The modulating effect of γ-aminobutyric acid on interdigestive periodic electrical activity of the small intestine is associated with the effect on cholinergic and nitrergic pathways.
Keywords: γ-aminobutyric acid, migrating myoelectric complex, cholinergic pathways, nitrergic pathways, rats.
Введение. В настоящее время широко известно, что γ-аминомасляная кислота (ГАМК) является основным тормозным нейротрансмиттером в центральной нервной системе, при этом ГАМК участвует в широком спектре физиологических функций в тканях и органах вне мозга [1, 2].
Существуют данные о том, что в энтеральной нервной системе (ЭНС) присутствуют ГАМК-ергические нейроны, а также обнаружены три вида рецепторов ГАМК (ГАМК-А, ГАМК-В и ГАМК-С) [3, 4], и определена их локализация в желудочно-кишечном тракте [2]. Взаимодействуя со своими рецепторами, ГАМК в ЭНС осуществляет разнонаправленное влияние на моторику – как тормозное, так и стимулирующее.
Необходимо отметить, что большинство исследований, направленных на изучение влияния ГАМК на моторику кишечника, выполнено в условиях in vitro на изолированных препаратах различных участков тонкой и толстой кишок [5-9]. Кроме того, в острых экспериментах in vivo на наркотизированных крысах изучено влияние ГАМК на электрическую активность тощей кишки [10]. Во всех исследованиях показано как стимулирующее, так и тормозное влияние ГАМК на моторику, при этом способность экзогенной ГАМК модулировать моторику кишечника авторы связывают со сложным балансом стимулирующих и ингибирующих эффектов, адресованных холинергическим и NO-ергическим нейронам.
Обратим внимание, что в большинстве существующих исследований, направленных на изучение эффектов ГАМК на моторику кишечника, не оценивается влияние ГАМК на мигрирующий миоэлектрический комплекс (ММК) и основные паттерны моторики (нерегулярную и регулярную активность).
Цель исследования: оценить участие холинергических и нитрергических механизмов в реализации эффектов ГАМК на периодическую электрическую активность тонкой кишки.
Методы и организация исследования. Исследования выполнены на крысах-самцах линии «Wistar» (n=21) с массой тела 340-390 г в возрасте 12 месяцев. Протокол исследования был одобрен локальным комитетом по биомедицинской этике Научно-исследовательского института скорой помощи им. Н.В. Склифосовского.
Все животные содержались в лаборатории в контролируемых условиях окружающей среды при температуре 20-24 °C и влажности 45-65%, с режимом освещенности с 8 до 20 часов – свет, с 20 до 8 часов – сумеречное освещение. Животные имели свободный доступ к еде и воде.
До начала экспериментов выполняли операционную подготовку крыс. Под наркозом проводили срединную лапаротомию. В тощую кишку в 5-ти см от связки Трейтца устанавливали зонд для энтерального введения растворов. Три монополярных электрода имплантировали в серозно-мышечный слой тощей кишки на расстоянии 10-ти, 15-ти и 20-ти см от связки Трейтца. Дополнительно в мышечный слой брюшной стенки вживляли референтный электрод. Зонд и провода электродов с помощью специальных игл-проводников выводили из брюшной полости через мягкие ткани брюшной стенки и тазовой области под кожей хвоста наружу. Брюшную полость послойно ушивали наглухо. Каждую крысу размещали в индивидуальной экспериментальной клетке. Эксперименты выполняли через 7 дней после вживления электродов и зонда.
Записи электрической активности выполняли с использованием электронного энцефалографа «NVX-52». Запись сигнала производилась в полосе частот от 0,05 Гц до 35 Гц, с частотой дискретизации 250 Гц. Анализ электромиограмм (ЭМГ) выполнялся с помощью прикладного программного обеспечения «AcqKnowledge 4.1». При анализе ЭМГ для отсечения медленноволновой составляющей сигнала использовали фильтр низких частот (5 Гц).
После 18-часовой пищевой депривации проводили регистрацию электрической активности трех участков тонкой кишки в течение 60 мин (фон). Затем в первой серии в полость тощей кишки вводили 1 мл ГАМК в дозе 70 мг/кг, во второй серии – 1 мл атропина в дозе 1 мг/кг, в третьей серии через 10 минут после введения атропина вводили ГАМК, в четвертой – 1 мл раствора нитроглицерина в дозе 0,8 мг/кг, а в пятой – 1 мл раствора нитроглицерина в дозе 0,8 мг/кг, после чего через 15 минут после введения нитроглицерина вводили 1 мл раствора ГАМК в дозе 70 мг/кг. Всем животным осуществляли регистрацию электрической активности тонкой кишки во время и через 2 часа после введения растворов.
Статистическую обработку данных проводили с использованием пакета статистической программы «Statistica 6.0» (StatSoft, Inc.). Для статистического анализа ЭМГ использовались непараметрические критерии: ранговый дисперсионный анализ по Фридману (ANOVA), после чего для последующего парного сравнения между группами использовался непараметрический Т-критерий Вилкоксона. Данные представляли в виде медианы и квартилей – Ме [Q1; Q3] %.
Результаты исследования и их обсуждение. В первой серии экспериментов (n=7) в фоновых записях наблюдалась выраженная периодичность электрической активности тонкой кишки во внепищеварительном периоде, во время которого происходило чередование периодов покоя и активности, что характеризует ММК – основной маркер электрической активности тонкой кишки в норме. ММК состоял из трех последовательных фаз: фаза I (покой – отсутствие спайковых потенциалов; сокращения отсутствуют) составляла 30 [24; 32] %, фаза II (нерегулярная активность – единичные нерегулярные спайковые потенциалы разной амплитуды; сокращения некоординированные и непропульсивные) – 45 [37; 52] %, а фаза III (регулярная активность – регулярные мощные пачки спайковых потенциалов; координированные и пропульсивные сокращения) – 25 [18; 35] % (рис. A).
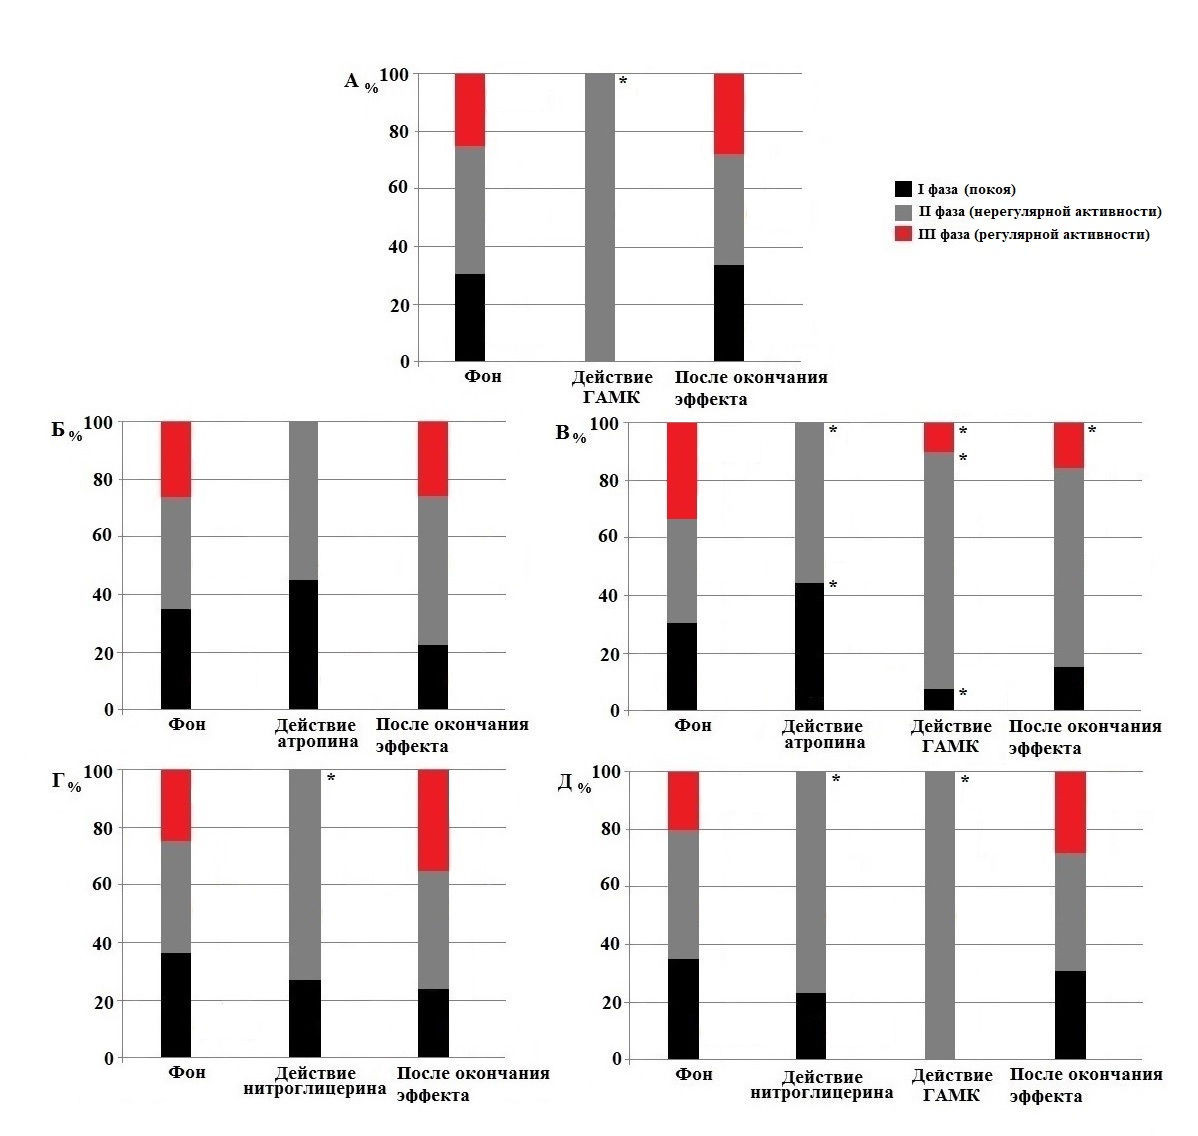
Рис. Параметры мигрирующего миоэлектрического комплекса тонкой кишки после введения γ-аминомасляной кислоты (А), атропина (Б), атропина с последующим введением ГАМК (В), нитроглицерина (Г) и нитроглицерина с последующим введением ГАМК (Д). * – p<0,05 по сравнению с фоном.
После введения ГАМК через 4-5 минут наблюдалось исчезновение ММК с исчезновением фаз I и III, на протяжении 32 [26; 34] минут регистрировалась II фаза комплекса, то есть происходила стимуляция непропульсивных некоординированных сокращений. После окончания действия ГАМК наблюдалось восстановление генерации ММК: фаза покоя составляла 34 [26; 35] % от продолжительности комплекса, фаза нерегулярной активности – 39 [31; 57] %, а фаза регулярной активности – 27 [20; 35] %. Все параметры ММК статистически значимо не отличались от фоновых значений (p>0,05) (рис. A).
Таким образом, энтеральное введение ГАМК оказывает двойственный эффект на моторику тонкого кишечника. ГАМК ингибирует пропульсивную моторику, но при этом стимулирует непропульсивную активность.
Во второй серии (n=7) анализ фоновых ЭМГ показал нормальную ритмическую активность тонкой кишки с наличием ММК: фаза покоя составляла 35 [35; 36] % от продолжительности комплекса, фаза нерегулярной активности – 40 [38; 41] %, а фаза регулярной активности – 26 [23; 28] % (рис. Б).
После энтерального введения атропина через 2-3 минуты на ЭМГ наблюдалось исчезновение регулярной пропульсивной активности тонкой кишки, а фазы покоя и нерегулярной активности регистрировались на протяжении 14 [14; 16] минут. Фаза I составляла 45 [30; 64] %, а фаза II – 55 [37; 100] %, данные значения статистически не отличались от фоновых (p>0,05). После окончания действия атропина выявилось восстановление генерации ММК: фаза покоя составляла 23 [19; 36] % от продолжительности комплекса, фаза нерегулярной активности – 41 [37; 56] %, а фаза регулярной активности – 25 [20; 27] %, все показатели были сходны с фоновыми значениями (p>0,05) (рис. Б).
Таким образом, исчезновение пропульсивной активности является основным эффектом атропина на электрическую активность тонкой кишки.
В третьей серии (n=5) анализ фоновых ЭМГ показал нормальную ритмическую активность тонкой кишки с наличием ММК, состоящего из трех последовательных фаз: фаза покоя составляла 31 [26; 33] % от продолжительности комплекса, фаза нерегулярной активности – 36 [36; 44] %, а фаза регулярной активности – 32 [26; 32] %. Введение атропина, как и во второй серии, приводило к исчезновению регулярной активности тонкой кишки. Регистрировалась фаза покоя – 42 [35; 57] % и нерегулярной активности – 64 [46; 100] %, данные значения статистически значимо отличались от фоновых (p<0,05). Введение ГАМК на фоне атропина через 5 [4; 6] минут вызывало появление внеочередной фазы III ММК. При этом продолжительность нерегулярной активности возрастала до 82 [78; 88] % (p<0,05), а фаза покоя уменьшалась до 7 [2; 12] % (p<0,05). Через 77 [25; 93] минут после этого происходило восстановление нормальной ритмической активности тонкой кишки с наличием ММК: фаза покоя составляла 16 [10; 32] % от продолжительности комплекса, фаза нерегулярной активности – 50 [48; 67] %, а фаза регулярной активности – 16 [13; 17] %, значения были ниже фоновых (p<0,05) (рис. В).
Таким образом, введение ГАМК на фоне блокады М-ХР вызывало кратковременную стимуляцию пропульсивной активности и увеличивало продолжительность нерегулярной активности тонкой кишки. Тем самым, можно предположить, что ГАМК осуществляет свое модулирующее действие посредством воздействия на холинергическую систему.
В четвертой серии (n=5) экспериментов анализ фоновых ЭМГ также показал нормальную ритмическую активность тонкой кишки с наличием ММК, состоящего из трех последовательных фаз: фаза покоя составляла 36 [33; 36] % от продолжительности комплекса, фаза нерегулярной активности – 41 [28; 41] %, а фаза регулярной активности – 24 [23; 34] %. После введения нитроглицерина наблюдалось исчезновение регулярной, пропульсивной активности тонкой кишки. На протяжении 22 [14; 22] минут регистрировались фаза покоя – 28 [24; 32] % (p>0,05) и фаза нерегулярной непропульсивной активности – 72 [68; 76] %, которая была в 1,8 раз выше фоновых значений (p<0,05). После завершения действия нитроглицерина наблюдалось восстановление нормальной ритмической активности тонкой кишки с наличием ММК: фаза покоя составляла 24 [22; 27] % от продолжительности комплекса, фаза нерегулярной активности – 42 [42; 45] %, а фаза регулярной активности – 34 [33; 35] %. Отметим, что все параметры ММК статистически не отличались от фоновых значений (p>0,05) (рис. Г).
Таким образом, основным эффектом нитроглицерина на электрическую активность тонкой кишки является исчезновение регулярной активности (фаза III).
В пятой серии (n=5) анализ фоновых ЭМГ показал нормальную ритмическую активность тонкой кишки с наличием ММК, состоящего из трех последовательных фаз: период покоя составлял 35 [32; 35] % от продолжительности комплекса, фаза нерегулярной активности – 44 [43; 45] %, а фаза регулярной активности составляла 20 [19; 24] %. После введения нитроглицерина, как и в четвертой серии, на ЭМГ наблюдалось исчезновение регулярной пропульсивной активности, регистрировалась фаза покоя – 22 [21; 22] и фаза нерегулярной непропульсивной активности – 79 [78; 79] %. Через 15 минут после введения нитроглицерина в кишку вводили ГАМК. Эффектом ГАМК на фоне продолжения действия нитроглицерина было исчезновение фазы покоя, то есть на протяжении 18 [17; 22] минут на ЭМГ регистрировалась только нерегулярная спайковая активность. После окончания действия ГАМК наблюдалось восстановление нормальной электрической активности тонкой кишки с наличием ММК: фаза покоя составляла 31 [26; 33] % от продолжительности комплекса, фаза нерегулярной активности – 38 [36; 45] %, а фаза регулярной активности составляла 27 [26; 31] %. Отметим, что все параметры ММК статистически не отличались от фоновых значений (p>0,05) (рис. Д).
Введение ГАМК на фоне NO-зависимого торможения электрической активности тонкой кишки приводило к увеличению продолжительности тормозного влияния нитроглицерина на пропульсивную перистальтику и стимулировало увеличение нерегулярной активности тонкой кишки.
Таким образом, энтеральное введение ГАМК здоровым животным изменяло периодическую электрическую активность тонкой кишки и приводило к стимуляции нерегулярной и подавлению регулярной пропульсивной электрической активности тонкой кишки. Введение ГАМК на фоне блокады М-холинорецепторов вызывало кратковременную стимуляцию пропульсивной активности и увеличивало продолжительность нерегулярной активности тонкой кишки. Введение ГАМК на фоне NO-зависимого торможения электрической активности тонкой кишки приводило к увеличению продолжительности тормозного влияния нитроглицерина на пропульсивную моторику тонкой кишки и стимулировало увеличение нерегулярной активности тонкой кишки. Полученные данные согласуются с данными литературы о двунаправленном влиянии ГАМК на моторику кишечника – как тормозном, так и стимулирующем, с участием холинергических и нитрергических путей [4, 8-10].
Заключение. В хронических экспериментах на крысах с имплантированными в тощую кишку электродами показано, что энтеральное введение ГАМК здоровым животным приводит к стимуляции нерегулярной и подавлению регулярной электрической активности тонкой кишки. Модулирующее влияние ГАМК на межпищеварительную периодическую электрическую активность тонкой кишки связано с воздействием на холинергические и нитрергические пути.
Конфликт интересов. Авторы заявляют об отсутствии конфликта интересов.
Conflict interest. The authors declare no conflict of interest.
СПИСОК ЛИТЕРАТУРЫ
- Есин, Р.Г. Стресс-индуцированные расстройства / Р.Г. Есин, О.Р. Есин, А.Р. Хакимова // Журнал неврологии и психиатрии им. С. С. Корсакова. – 2020. – Т. 120. – № 5. – С. 131‑137. DOI: 10.17116/jnevro2020120051131.
- Endogenous γ-hydroxybutyric acid is in the rat, mouse and human gastrointestinal tract / L. Tedeschi, M. Carai., G. Frison [et al.] // Life Sciences. – 2003. – Vol. 72. – No. 22. – P. 2481-2488. DOI: 10.1016/s0024-3205(03)00143-7.
- Malomouzh, A. Components of the GABAergic signaling in the peripheral cholinergic synapses of vertebrates: A review / Malomouzh, V. Ilyin, E. Nikolsky // Amino Acids. – 2019. – Vol. 51. – P. 1093-1102. DOI: 10.1007/s00726-019-02754-x.
- Krantis, A. GABA in the mammalian enteric nervous system / Krantis // Physiology. – 2000. – Vol. 15. – No. 6. – P. 284-290. DOI: 10.1152/physiologyonline.2000.15.6.284.
- Ong, J. GABAA-and GABAB-receptor-mediated modification of intestinal motility / J. Ong, D.I.B. Kerr // European Journal of Pharmacology. – 1982. – Vol. 86. – No. 1. – P. 9-17. DOI: 1016/0014-2999(82)90390-9.
- An in vitro study of the relationship between GABA receptor function and propulsive motility in the distal colon of the rabbit / M. Tonini, A. Crema, G.M. Frigo [et al.] // British Journal of Pharmacology. – 1989. – Vol. 98. – No. 4. – P. 1109-1118. DOI: 1111/j.1476-5381.1989.tb12654.x.
- Smid, S.D. Vagal neurotransmission to the ferret lower oesophageal sphincter: inhibition via GABAB receptors / S.D. Smid, L.A. Blackshaw // British Journal of Pharmacology. – 2000. – Vol. 131. – No. 3. – P. 624-630. DOI: 1038/sj.bjp.0703602.
- Zizzo, M.G. Functional evidence for GABA as modulator of the contractility of the longitudinal muscle in mouse duodenum: role of GABAA and GABAC receptors / M.G. Zizzo, F. Mulè, R. Serio // Neuropharmacology. – 2007. – Vol. 52. – No. 8. – P. 1685-1169. DOI: 1016/j.neuropharm.2007.03.016.
- Age-related differences of γ-aminobutyric acid (GABA) ergic transmission in human colonic smooth muscle /G. Zizzo, A. Cicio, S. Raimondo [et al.] // Neurogastroenterology & Motility. – 2022. – Vol. 34. – No. 3. – P. e14248. DOI: 10.1111/nmo.14248.
- Белобородая, М.В. Реализация влияний блуждающего нерва на моторику кишечника в условиях действия ингибиторных аминокислот / М.В. Белобородая, С.А. Руткевич, А.Г. Чумак // Труды Белорусского государственного университета. Серия: Физиологические, биохимические и молекулярные основы функционирования биосистем. – 2011. – Т. 6. – № 1. – С. 33-38.
REFERENCES
- Esin R.G., Esin O.R., Khakimova A.R. Stress-induced disorders. S.S. Korsakov Journal of Neurology and Psychiatry, 2020, vol. 120, no. 5, pp. 131- DOI: 10.17116/jnevro2020120051131. (in Russ.)
- Tedeschi L., Carai M., Frison G. et al. Endogenous γ-hydroxybutyric acid is in the rat, mouse and human gastrointestinal tract. Life Sciences, 2003, 72, no. 22, pp. 2481-2488. DOI: 10.1016/s0024-3205(03)00143-7.
- Malomouzh A., Ilyin V., Nikolsky E. Components of the GABAergic signaling in the peripheral cholinergic synapses of vertebrates: A review. Amino Acids, 2019, vol. 51, pp. 1093-1102. DOI: 1007/s00726-019-02754-x.
- Krantis A. GABA in the mammalian enteric nervous system. Physiology, 2000, vol. 15, no. 6, pp. 284-290. DOI: 1152/physiologyonline.2000.15.6.284.
- Ong J., Kerr D.I.B. GABAA-and GABAB-receptor-mediated modification of intestinal motility. European Journal of Pharmacology, 1982, vol. 86, no. 1, pp. 9-17. DOI: 1016/0014-2999(82)90390-9.
- Tonini M., Crema A., Frigo G.M., Rizzi C.A., Manzo L., Candura S.M., Onori L. An in vitro study of the relationship between GABA receptor function and propulsive motility in the distal colon of the rabbit. British Journal of Pharmacology, 1989, vol. 98, no. 4, pp. 1109-1118. DOI: 1111/j.1476-5381.1989.tb12654.x.
- Smid S.D., Blackshaw L.A. Vagal neurotransmission to the ferret lower oesophageal sphincter: inhibition via GABAB receptors. British Journal of Pharmacology, 2000, vol. 131, no. 3, pp. 624-630. DOI: 1038/sj.bjp.0703602.
- Zizzo M.G., Mulè F., Serio R. Functional evidence for GABA as modulator of the contractility of the longitudinal muscle in mouse duodenum: role of GABAA and GABAC receptors. Neuropharmacology, 2007, vol. 52, no. 8, pp. 1685-1169. DOI: 1016/j.neuropharm.2007.03.016.
- Zizzo M.G., Cicio A., Raimondo S., Alessandro R. Serio R. Age‐related differences of γ‐aminobutyric acid (GABA) ergic transmission in human colonic smooth muscle. Neurogastroenterology & Motility, 2022, vol. 34, no.3, pp. e14248. DOI: 1111/nmo.14248
- Beloborodaya M.V., Rutkevich S.A., Chumak A.G. Vagus influences realization on intestine motility after inhibitory amino acids injection. Proceedings of the Belarusian State University. Series of Physiological, Biochemical and Molecular Biology Sciences, 2011, vol. 6, no. 1, pp. 33-38. (in Russ.)
СВЕДЕНИЯ ОБ АВТОРАХ:
Юлия Валерьевна Гурман – научный сотрудник научной лаборатории экспериментальной патологии, ГБУЗ «Научно-исследовательский институт скорой помощи им. Н.В. Склифосовского ДЗ г. Москвы», Москва, e-mail: Адрес электронной почты защищен от спам-ботов. Для просмотра адреса в вашем браузере должен быть включен Javascript..
Наталия Сергеевна Тропская – доктор биологических наук, заведующая научной лабораторией экспериментальной патологии, ГБУЗ «Научно-исследовательский институт скорой помощи им. Н.В. Склифосовского ДЗ г. Москвы»; профессор кафедры 903, ФГБОУ ВО «Московский авиационный институт (национальный исследовательский университет)», Москва, e-mail: Адрес электронной почты защищен от спам-ботов. Для просмотра адреса в вашем браузере должен быть включен Javascript..
INFORMATION ABOUT THE AUTHORS:
Yulia V. Gurman – Researcher at the Scientific Laboratory of Experimental Pathology, N.V. Sklifosovsky Research Institute for Emergency Medicine of the Moscow City Healthcare Department, Moscow, e-mail: Адрес электронной почты защищен от спам-ботов. Для просмотра адреса в вашем браузере должен быть включен Javascript..
Nataliya S. Tropskaya – Doctor of Biological Science, Head of the Scientific Laboratory of Experimental Pathology, N.V. Sklifosovsky Research Institute for Emergency Medicine of the Moscow City Healthcare Department; Professor of the Department 903, Moscow Aviation Institute (National Research University), Moscow, e-mail: Адрес электронной почты защищен от спам-ботов. Для просмотра адреса в вашем браузере должен быть включен Javascript..
Для цитирования: Гурман, Ю.В. Участие холинергических и нитрергических механизмов в реализации эффектов γ-аминомасляной кислоты на периодическую электрическую активность тонкой кишки / Ю.В. Гурман, Н.С. Тропская // Современные вопросы биомедицины. – 2025. – Т. 9. – № 3(33). DOI: 10.24412/2588-0500-2025_09_03_5
For citation: Gurman Yu.V., Tropskaya N.S. Involvement of cholinergic and nitrergic pathways in the effects of γ-aminobutyric acid on periodic electrical activity of the small intestine. Modern Issues of Biomedicine, 2025, vol. 9, no. 3(33). DOI: 10.24412/2588-0500-2025_09_03_5