

Дата публикации: 25.12.2025
DOI: 10.24412/2588-0500-2025_09_S1_3
УДК 616
ВЛИЯНИЕ ВРЕМЕНИ ВЫПОЛНЕНИЯ ФИЗИЧЕСКИХ УПРАЖНЕНИЙ НА ЭКСПРЕССИЮ РАЗОБЩАЮЩЕГО БЕЛКА 1 В БУРОЙ ЖИРОВОЙ ТКАНИ У МЫШЕЙ С ЭКСПЕРИМЕНТАЛЬНОЙ МОДЕЛЬЮ САХАРНОГО ДИАБЕТА 2 ТИПА
Е.Ю. Дьякова, Ю. Юнь, К.Г. Милованова, С.А. Попов
Федеральное государственное автономное образовательное учреждение высшего образования «Национальный исследовательский Томский государственный университет», г. Томск, Россия
Аннотация. Введение. Цель: оценить влияние утренних, вечерних и чередующихся тренировок на экспрессию разобщающего белка 1 в бурой жировой ткани у мышей с моделью сахарного диабета 2 типа. Методы. Мышей кормили стандартным или высокожировым рационом в течение 12 недель, после чего проводили 4-недельные беговые тренировки (утром, вечером или в чередующемся режиме). Определяли массу тела и бурой жировой ткани, уровень разобщающего белка 1 измеряли методом иммуноферментного анализа. Результаты. Высокожировое питание снижало экспрессию разобщающего белка 1. Физическая тренировка уменьшала массу тела и бурой жировой ткани, одновременно повышая уровень экспрессии разобщающего белка 1. Наиболее выраженный эффект наблюдался при утренних тренировках. Заключение. Физическая активность повышает экспрессию разобщающего белка 1 и улучшает жировой обмен. Эффект тренировок существенно зависит от времени их выполнения, учет циркадных ритмов повышает метаболическую эффективность физических нагрузок.
Ключевые слова: бурая жировая ткань, физические упражнения, циркадные ритмы, высокожировой рацион, разобщающий белок 1, сахарный диабет 2 типа.
EFFECTS OF EXERCISE TIMING ON UNCOUPLING PROTEIN 1 EXPRESSION IN BROWN ADIPOSE TISSUE IN A MOUSE MODEL OF TYPE 2 DIABETES MELLITUS
E.Yu. D’yakova, Yu. Yun, K.G. Milovanova, S.A. Popov
National Research Tomsk State University, Tomsk, Russia
Abstract. Introduction. Objective: to evaluate how morning, evening, and alternating training schedules influence uncoupling protein 1 expression in brown adipose tissue in mice with an experimental model of type 2 diabetes mellitus. Methods. Male C57BL/6J mice received either a standard or a high-fat diet for 12 weeks, followed by a 4-week treadmill program conducted in the morning, in the evening, or on an alternating schedule. Sedentary animals served as controls. Body weight, brown adipose tissue mass, and uncoupling protein 1 levels were assessed using standard morphometry and enzyme-linked immunosorbent assay. Results. The high-fat diet increased body weight and brown adipose tissue mass and reduced uncoupling protein 1 expression. Exercise decreased body and brown adipose tissue mass and increased uncoupling protein 1. The most pronounced effect was observed with morning training, whereas the alternating schedule also promoted an increase but without statistical significance. Conclusion. The thermogenic response of brown adipose tissue depends on exercise timing. Aligning training with circadian rhythms may enhance the metabolic effectiveness of physical activity.
Keywords: brown adipose tissue, physical exercise, circadian rhythms, high-fat diet, uncoupling protein 1, type 2 diabetes mellitus.
Введение. Ожирение или чрезмерная прибавка в весе считаются самыми значительными и критическими факторами риска развития и прогрессирования сахарного диабета 2 типа (СД2) во всех возрастных группах [1]. Бурая жировая ткань (БЖТ) играет ключевую роль в термогенезе, и ее активация способствует лечению ожирения и СД2, что делает ее терапевтической мишенью для борьбы с этими заболеваниями [2]. Разобщающий белок 1 (UCP1) – первый идентифицированный белок этой группы, экспрессируется преимущественно в бурых и бежевых адипоцитах. Активация UCP1 разобщает митохондриальное дыхание и синтез аденозинтрифосфата, усиливая дыхательную активность, увеличивая потребление кислорода и способствуя продукции тепла [3]. Современные исследования демонстрируют, что ожирение, инсулинорезистентность и СД2 способны существенно влиять на уровень экспрессии UCP1. У лиц с преддиабетом экспрессия гена UCP1 в жировой ткани значительно снижена. Установлено, что связь между сниженной экспрессией UCP1 и нарушениями постпрандиального метаболизма триглицеридов может способствовать повышенной предрасположенности к развитию СД2 [4]. В условиях диабета наблюдается значительное снижение экспрессии термогенных генов, включая UCP1, в БЖТ. Эти изменения сопровождаются увеличением размеров липидных капель и морфологическими признаками, характерными для так называемого «отбеливания» БЖТ [5]. В бежевых адипоцитах, полученных из жировых стволовых клеток пациентов с СД2, экспрессия UCP1 была достоверно снижена и сопровождалась повышением уровня митохондриальных активных форм кислорода (ROS). Предполагается, что нарушение экспрессии UCP1 может способствовать накоплению митохондриальных ROS, а возникающий в результате окислительный стресс может играть патогенетическую роль в развитии инсулинорезистентности [6]. Физическая активность – признанное и эффективное вмешательство в терапии СД2. Различные формы упражнений снижают уровень гликированного гемоглобина, улучшают регуляцию глюкозы и липидный обмен [7]. Структурированная физическая нагрузка достоверно снижает инсулинорезистентность, гликированный гемоглобин и уровни глюкозы у пациентов с диабетом 2 типа [8]. Помимо типа, продолжительности и интенсивности упражнений важным фактором, определяющим физиологические эффекты, также признано время суток, в которое выполняется физическая нагрузка. Циркадные ритмы являются ключевыми гомеостатическими регуляторами, синхронизируемыми как световыми, так и не световыми стимулами, включая прием пищи, температуру окружающей среды и физическую активность, и регулируют широкий спектр геномных и физиологических процессов почти во всех типах клеток. Суточные колебания наблюдаются не только в физической работоспособности, но и в метаболических эффектах тренировок. Время выполнения упражнений может существенно повлиять на метаболизм, при этом оптимально подобранное время тренировки способно усилить положительное влияние физической активности [9].
БЖТ демонстрирует выраженные циркадные колебания в процессе окислительного метаболизма глюкозы и липидов. Ранее было показано, что учет времени суток в качестве переменной может повысить эффективность воздействий, направленных на активацию БЖТ [10]. У нетренированных здоровых мужчин, несмотря на сходное улучшение произвольной мышечной силы, в группах утренних и дневных тренировок только утренняя тренировка вызывала значительное повышение уровня фосфорилирования ключевых сигнальных молекул в мышцах, тогда как в группе дневной тренировки значимых изменений выявлено не было [11].
Несмотря на доказанную эффективность физических упражнений в терапии СД2 механизмы, лежащие в основе их метаболического действия, остаются недостаточно изученными, особенно в контексте времени суток, в которое выполняется нагрузка. Суточные колебания метаболической активности БЖТ, включая экспрессию термогенных генов, таких как UCP1, указывают на значительную роль циркадных ритмов в регуляции жирового обмена. В этой связи актуальным представляется исследование взаимосвязи между временем физической нагрузки и уровнем экспрессии UCP1 в БЖТ при диабете. Настоящая работа направлена на оценку влияния утренних, вечерних и чередующихся тренировок на активацию БЖТ у мышей с экспериментальной моделью СД2.
Цель исследования: изучить влияние физических упражнений, выполняемых в разное время суток, на экспрессию UCP1 в БЖТ у мышей с экспериментальной моделью СД2.
Методы и организация исследования. Все процедуры, выполненные в исследованиях с участием животных, соответствовали этическим стандартам, утвержденным правовыми актами Российской Федерации и международными нормами содержания и обращения с лабораторными животными (включая Директиву Европейского парламента и Совета 2010/63/EU от 22 сентября 2010 года), и были одобрены Комитетом по биоэтике Биологического института Томского государственного университета (протокол № 32 от 2 декабря 2019 г.).
В качестве объекта исследования использовались мыши-самцы линии C57BL/6J в возрасте 4-х недель. Мыши были получены из вивария Томского национального исследовательского медицинского центра Российской академии наук, Научно-исследовательский институт фармакологии и регенеративной медицины им. Е.Д. Гольдберга. Все группы были синхронизированы. Режим содержания животных: день/ночь: 12/12 ч, световой день начинался с 6:00, свободный доступ к пище и воде, температура в помещении 24 °С.
Схема эксперимента представлена на рисунке 1. Эксперимент продолжался 16 недель. До 12-й недели мыши были разделены на 2 подгруппы:
- животные, получавшие стандартный рацион (SD) – 28 мышей;
- животные, находившиеся на высокожировой диете (HFD, 59% калорий из жиров) – 28 мышей.
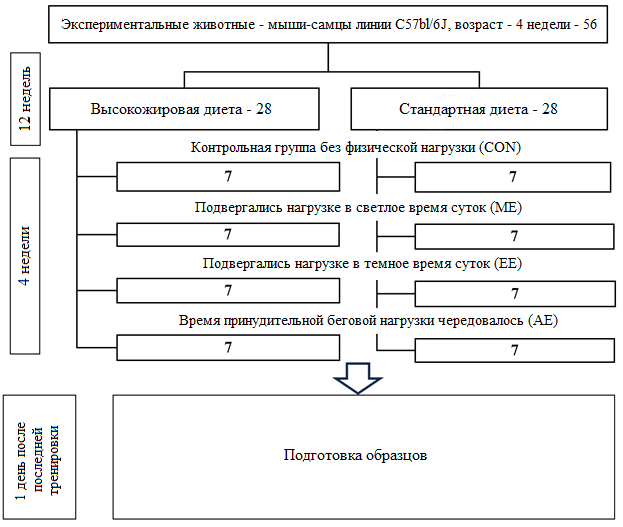
Рис. 1. Дизайн эксперимента
Для формирования модели СД2 использовалась высокожировая диета в течение 12 недель, которая была разработана специально для данного эксперимента. Корм для первой группы был приготовлен на основе описанного ниже корма «Прокорм» (50%) с включением животного (свиной жир) (20%) и растительного (подсолнечное масло) (10%) жира, сахара (15%), сухого молока (5%); калорийность – 5100 ккал/кг, в том числе на долю жиров приходилось 59% калорийности. Продукты измельчались в блендере в гомогенную смесь, после чего масса формировалась в гранулы диаметром до 10 мм и высушивалась в духовом шкафу при контролируемой температуре. Корм приготовлялся на 5 дней и хранился при -20 °С. В предварительных исследованиях, опубликованных нами ранее [12], было показано, что использование высокожировой диеты у мышей приводит к увеличению массы тела и формированию ожирения, гипергликемии, снижению толерантности к глюкозе и гиперинсулинемии. Все это свидетельствует о высокой степени адекватности разработанной экспериментальной модели заболеванию СД2.
Вторая группа питалась кормом для лабораторных животных «Прокорм» (ЗАО Биопро, Новосибирск): пшеница, ячмень, отруби, глютен кукурузный, мука рыбная, белковая кормосмесь, масло подсолнечное, шрот соевый; калорийность – 3000 ккал/кг, в том числе на долю жиров приходилось 18% калорийности.
Начиная с 12-ой недели каждая группа животных была поделена на подгруппы: подвергавшихся (основная – 21 животное) и не подвергавшихся (контрольная (CON) – 7 животных) принудительным беговым нагрузкам (рис. 1).
Группы с физической нагрузкой были дополнительно разделены на три подгруппы в зависимости от времени тренировки.
Группа ME – подвергались беговой нагрузке в светлое время суток (с 8-00 до 10-00 ч) – 7 животных.
Группа EE – подвергались беговой нагрузке в темное время суток (с 19-00 до 21-00 ч) – 7 животных.
Группа AE – время принудительной беговой нагрузки чередовалось (переменный режим): первую и третью недели в темное время суток (с 19-00 до 21-00 ч), вторую и четвертую недели в светлое время суток (с 8-00 до 10-00 ч) – 7 животных.
Все животные в начале каждой тренировки находились в фазе бодрствования.
Для нормирования нагрузки была использована разработанная по нашему заказу беговая дорожка для мышей BMELAB SID-TM10 [13]. Принуждение к бегу осуществлялось электрическим раздражением, напряжение подавалось на металлическую сетку, расположенную на задней стенке камеры. Дорожка имела тумблер включения ленты, тумблер включения тока, регулятор скорости движения ленты, регулятор силы тока, рычаг изменения угла наклона ленты. Мыши на дорожке были изолированы друг от друга стенками из оргстекла. Покрытие движущейся ленты имело резиновую шероховатую поверхность. Сверху дорожка закрывалась прозрачной крышкой из оргстекла.
Принудительные беговые нагрузки проводились в течение 4 недель 6 раз в неделю, продолжительность нагрузки постепенно увеличивалась в течение первых 6 дней с 10 до 60 мин (прирост 10 мин в день) и не изменялась больше на протяжении следующих 3 недель Каждую неделю изменялись угол подъема полотна беговой дорожки (от 0 до 10°) и скорость ее вращения (от 15 до 18 м/мин). Один раз в неделю нагрузки не выполнялись (на 7-й день).
Вывод животных из эксперимента проводился методом декапитации через 24 ч после последней нагрузки, после чего немедленно изымалась межлопаточная БЖТ. Извлеченные образцы моментально замораживались в жидком азоте. Жировая ткань промывалась в охлажденном физиологическом растворе для удаления остатков крови, просушивалась фильтровальной бумагой, взвешивалась и документировалась. Каждый образец распределяли по предварительно охлажденным криовиалам и немедленно помещали в жидкий азот. После завершения сбора всех образцов ткани были перенесены на длительное хранение в морозильник при -80 °C.
Для гомогенизации бурой жировой ткани использовали 500 мкл RIPA-буфера (50 мМ Tris-HCl, pH 7,4; 150 мМ NaCl; 1% NP-40; 0,1% SDS; 0,5% деоксихолат натрия; Sigma-Aldrich, США) на 50 мг ткани. Гомогенизация проводилась при 4 °C с использованием вихревого миксера Digital Vortex-Genie 2 (Scientific Industries, США), оснащенного металлическими шариками, в течение 15 минут. Затем образцы инкубировали на мини-роторном шейкере при 4 °C в течение 1 часа, охлаждали на льду 15 минут и повторно перемешивали в тех же условиях еще 15 минут. После гомогенизации образцы центрифугировали при 10000 g в течение 15 минут при 4 °C на центрифуге Eppendorf 5415R (Германия). Липидный слой удаляли, прозрачный супернатант отбирали для анализа. Концентрация общего белка определялась методом Брэдфорда (Bio-Rad, США). Определение уровня UCP1 проводилось методом иммуноферментного анализа с использованием коммерческого набора (Abcam, Великобритания), строго в соответствии с инструкцией производителя. Образцы и стандарты вносили в 96-луночный планшет, проводили инкубацию при 37 °C, промывку и этапы добавления детектирующего антитела, HRP-конъюгата и TMB-субстрата. Оптическую плотность измеряли при 450 нм с помощью микропланшетного фотометра Multiskan FC (Thermo Fisher Scientific, США).
Нормальность распределения данных проверялась с использованием теста Шапиро-Уилка (Shapiro-Wilk test) в программе GraphPad Prism 9.0 (GraphPad Software, США). Большинство групп соответствовали критериям нормальности (p>0,05). Для групп с отклонением от нормального распределения дополнительно проводился визуальный анализ распределения (Q-Q plot), подтверждено отсутствие значимых выбросов.
Данные представлены как среднее значение ± стандартное отклонение (M±σ). Статистический анализ проводился с использованием программного обеспечения GraphPad Prism 9.0. Для оценки влияния факторов диеты (стандартная против высокожировой) и режима физической нагрузки (отсутствие нагрузки, утренние, вечерние или чередующиеся тренировки) на массу тела, массу БЖТ и уровень экспрессии UCP1 применялся двухфакторный дисперсионный анализ (Two-way ANOVA). При наличии статистически значимых различий выполнялся пост-хок анализ с использованием критерия Тьюки (Tukey’s multiple comparisons test). Уровень значимости считался статистически значимым при p<0,05.
Результаты исследования и их обсуждение. Масса тела мышей отслеживалась на протяжении всего эксперимента на 1-й, 4-й, 8-й и 12-й неделях (рис. 2). На 1-й неделе различия между группами были статистически незначимыми. К 12-й неделе у животных, получавших высокожировую диету (HFD), наблюдался значительный прирост массы тела, особенно между 8-й и 12-й неделями эксперимента. После завершения тренировочного этапа (16-я неделя) во всех подгруппах с физической нагрузкой наблюдалось достоверное снижение массы тела по сравнению с соответствующими контрольными группами без тренировки (SD-CON и HFD-CON, p<0,05). Наиболее выраженный эффект был зафиксирован в группе HFD-AE с чередующимся временем тренировок (p<0,05 по сравнению с HFD-ME и HFD-EE).
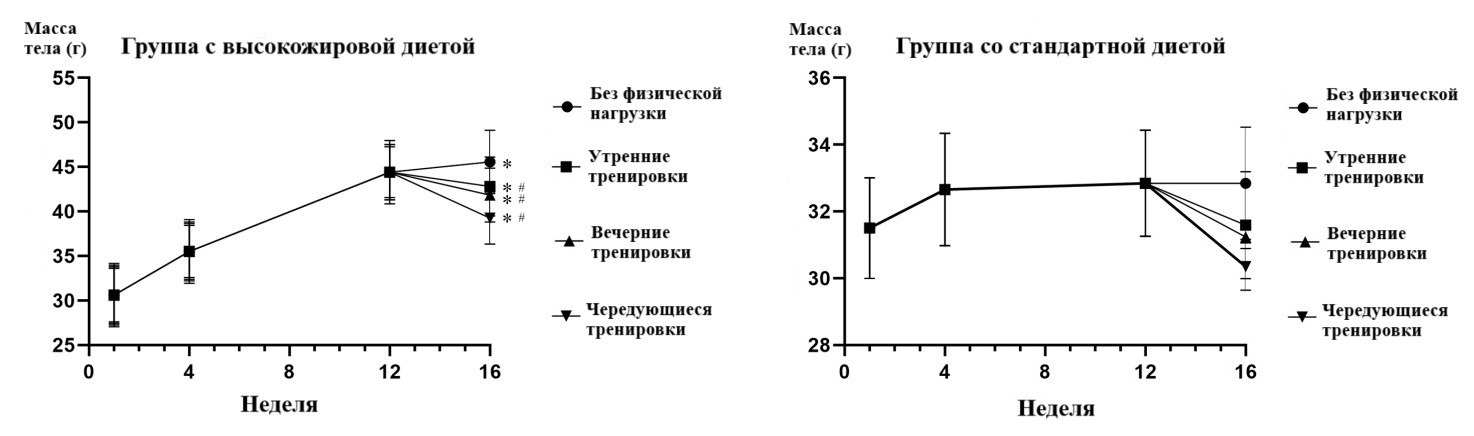
Рис 2. Изменение массы тела мышей в процессе эксперимента
Примечание: * – статистически значимое различие по сравнению с 1-й неделей (p<0,05); # – статистически значимое различие по сравнению с соответствующей контрольной группой без тренировки (p<0,05).
Масса БЖТ различалась в зависимости от типа диеты и режима физической активности (рис. 3). У животных, получавших высокожировую диету (HFD), наблюдалось значительное увеличение массы БЖТ по сравнению с соответствующими группами на стандартной диете (SD, p<0,05). Физическая нагрузка способствовала снижению массы БЖТ в HFD-группах: наиболее выраженный эффект отмечен в группе с чередующимися тренировками (HFD-AE, p<0,05 по сравнению с HFD-CON), где масса БЖТ снижалась вдвое. Также значимое снижение наблюдалось в подгруппе HFD-ME (утренние тренировки, p<0,05 к HFD-CON). В группе HFD-EE (вечерние тренировки) масса БЖТ оставалась высокой и статистически не отличалась от HFD-CON. У животных на стандартной диете (SD) тренировки также вызывали умеренное снижение массы БЖТ, однако между подгруппами SD статистически значимых различий не зафиксировано.
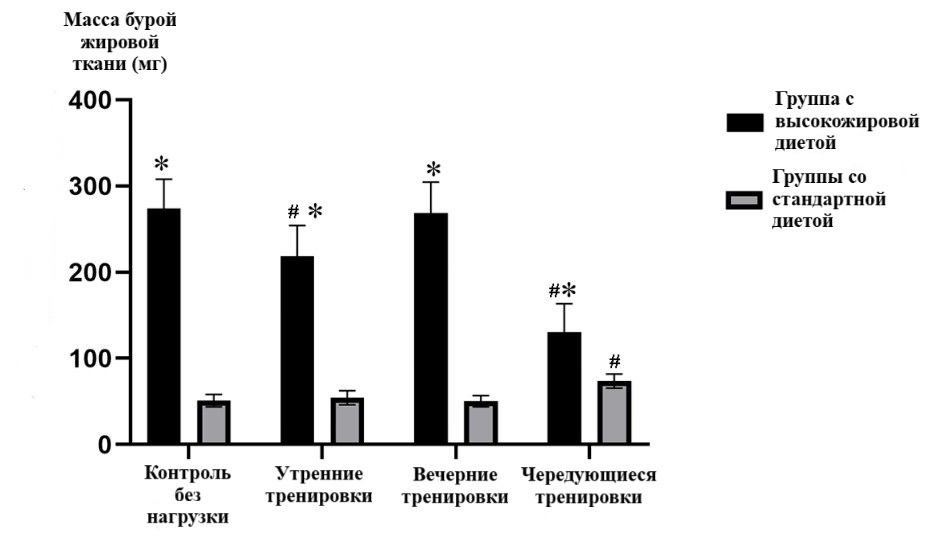
Рис 3. Масса бурой жировой ткани у мышей при различных режимах питания и физической активности
Примечание: столбики представляют M±σ (n=7 в подгруппе). Статистический анализ: двухфакторный ANOVA с пост-хок критерием Тьюки. # – значимые различия по сравнению с контрольной группой в рамках того же рациона (p<0,05). При высокожировом питании наиболее выраженное снижение массы бурой жировой ткани отмечено в группе чередующихся тренировок (p<0,05 по сравнению с контролем без нагрузки).
Анализ показал, что экспрессия UCP1 существенно зависела от типа рациона и времени выполнения упражнений. На стандартном рационе утренняя тренировка сопровождалась значимым повышением уровня UCP1 по сравнению с контрольной группой (p<0,05), тогда как вечерние и чередующиеся занятия не вызывали статистически значимых изменений. У животных на высокожировом рационе средние значения UCP1 были ниже, чем у контрольных животных на стандартном рационе, что указывает на угнетение термогенного потенциала БЖТ при метаболической перегрузке. На фоне высокожирового рациона утренние и чередующиеся тренировки демонстрировали направленность к повышению экспрессии UCP1 (p>0,05), что можно трактовать как частичное восстановление ответной реакции без достижения статистической значимости.
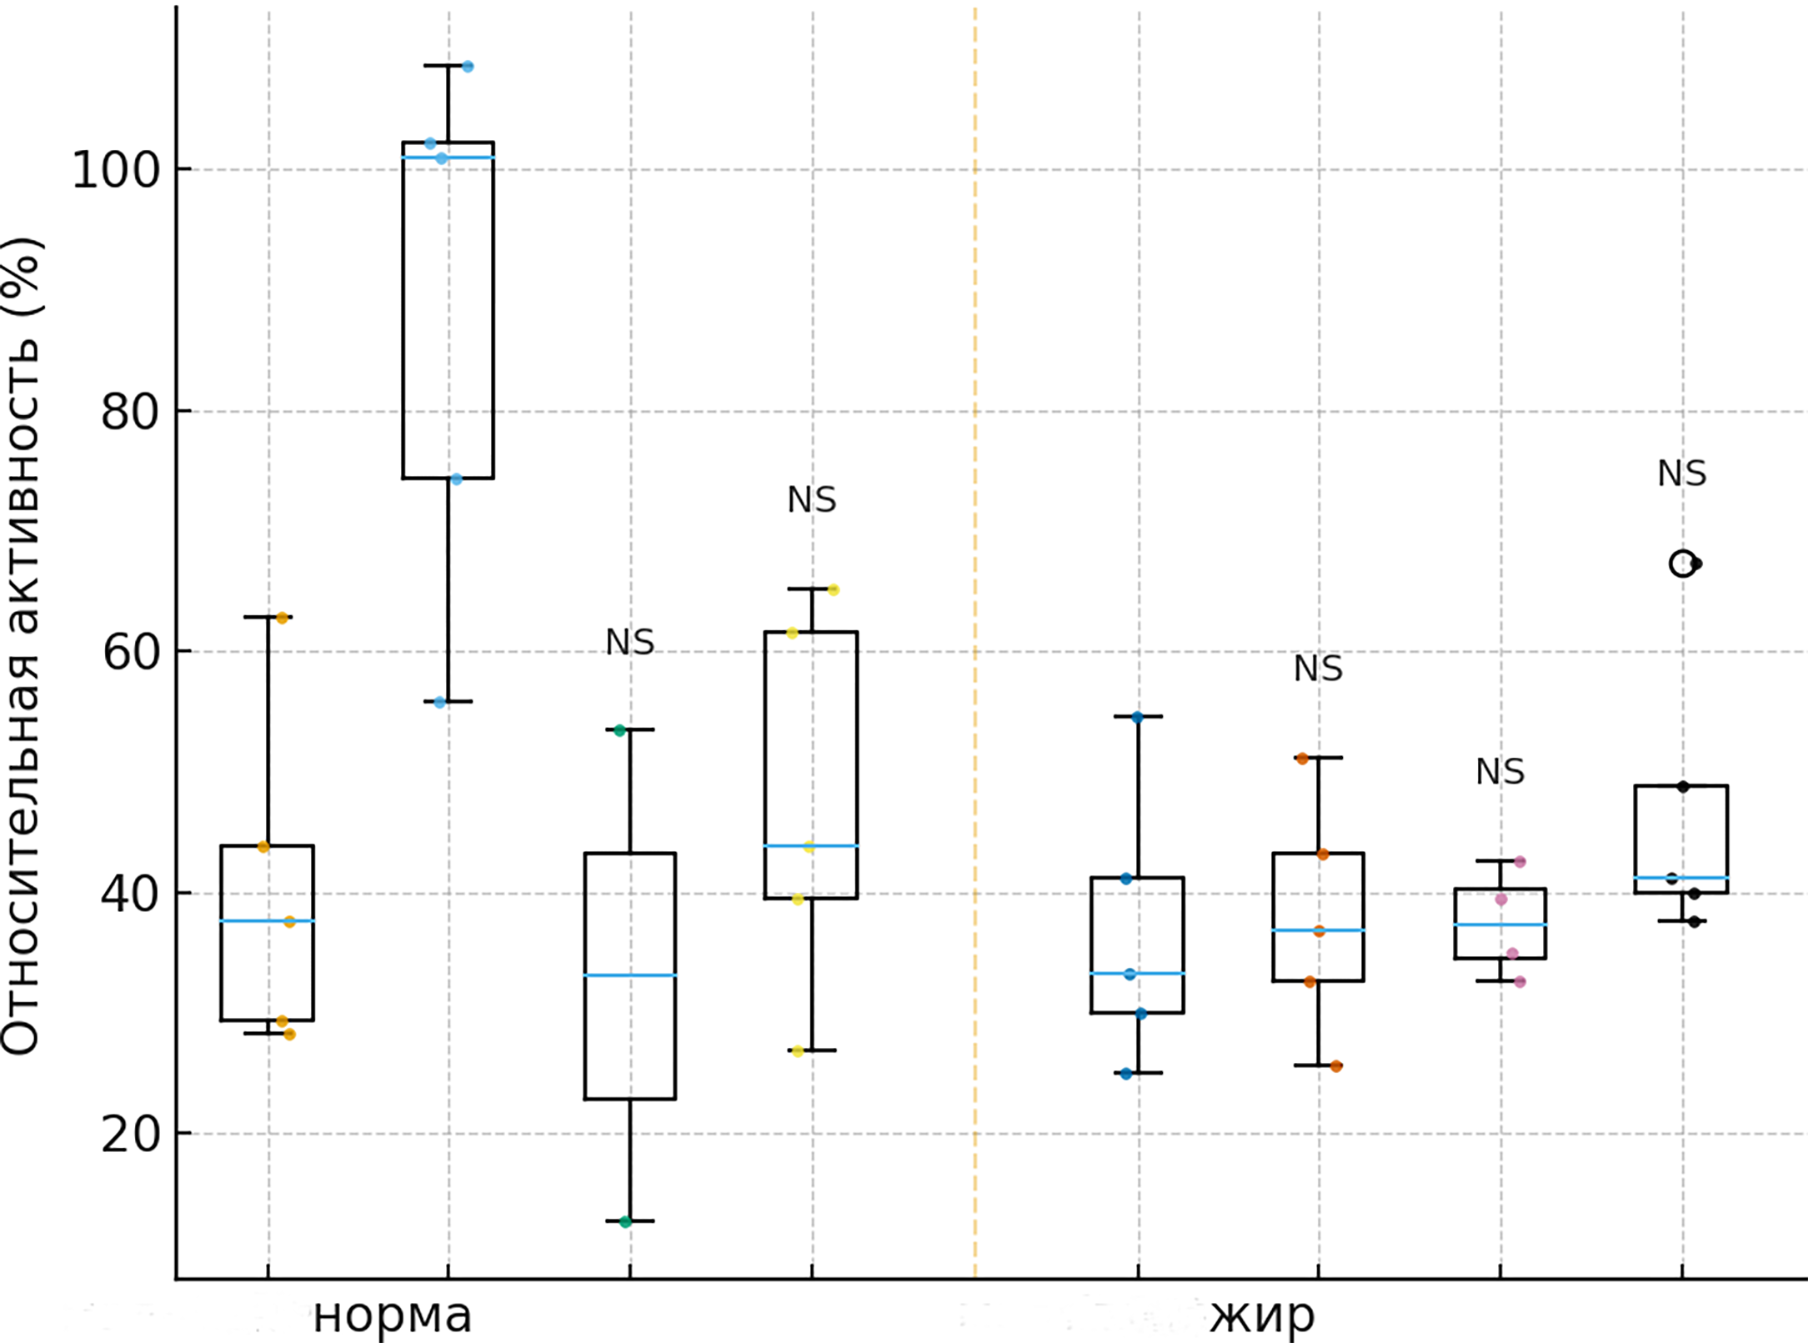
Рис 4. Экспрессия разобщающего белка 1 (UCP1) в бурой жировой ткани после тренировок, проведенных в разное время суток
Примечание: слева направо представлены группы: контроль без нагрузки (CON), утренние тренировки (ME), вечерние тренировки (EE), чередующиеся тренировки (AE).
В настоящем исследовании была проведена систематическая оценка влияния времени проведения физических упражнений – утро, вечер, чередование – на экспрессию UCP1 в БЖТ у мышей на фоне стандартной и высокожировой диет. Полученные данные демонстрируют, что физическая нагрузка достоверно снижает вызванное высокожировой диетой увеличение массы тела и объема жировой ткани, активирует метаболизм БЖТ и усиливает ее термогенную способность. Важно отметить, что регуляция экспрессии UCP1 под действием физических упражнений зависит от времени их проведения, что указывает на важную роль циркадных механизмов в адаптации БЖТ к физической активности.
В последнее время все большее внимание уделяется роли циркадных ритмов в регуляции метаболизма и их потенциалу в качестве мишени для терапевтического вмешательства. Нарушение суточных биоритмов ассоциировано со множеством заболеваний человека, включая метаболический синдром и сердечно-сосудистые расстройства [14]. Циркадные часы играют ключевую роль в регуляции обмена веществ. Например, у мышей с мутациями в генах, отвечающих за поддержание биологических ритмов, наблюдается значительный набор массы тела, проявляются признаки метаболических нарушений, такие как гипергликемия и гиперлипидемия [15]. Кроме того, состав рациона питания может существенно влиять на функционирование циркадных механизмов. В экспериментальных моделях на животных показано, что высокожировая диета нарушает нормальные суточные колебания, что приводит к изменению моделей двигательной активности и поведения, связанного с питанием. В частности, у мышей на высокожировом рационе зафиксировано нарушение ритма локомоторной активности, что дополнительно способствует метаболической дестабилизации [16]. У здоровых людей митохондриальная окислительная функция в скелетных мышцах также регулируется циркадными ритмами, однако данная регуляция может нарушаться под действием инсулинорезистентности [17]. Ранее было показано, что эффективность физической активности в контроле гликемии у пациентов с диабетом зависит от времени суток, в которое проводится тренировка. Например, высокоинтенсивные интервальные тренировки (ВИИТ), выполняемые во второй половине дня, оказываются более эффективными, чем аналогичные утренние тренировки, в снижении уровня глюкозы в крови у мужчин с диабетом 2 типа. Более того, по сравнению с состоянием до тренировки и с дневными ВИИТ, утренние ВИИТ сопровождались повышенным уровнем глюкозы в крови в течение нескольких часов после занятия [18]. Аналогичные эффекты времени суток наблюдались и у пациентов с сахарным диабетом 1 типа. Так, физическая нагрузка средней интенсивности, выполненная утром, приводила к более выраженному повышению уровня глюкозы в крови, чем аналогичная тренировка, проведенная во второй половине дня [19]. В совокупности эти данные подтверждают, что метаболические эффекты физических упражнений, такие как влияние на экспрессию генов, инсулиновую сигнализацию и метаболизм глюкозы, зависят от времени суток.
Полученные в нашем исследовании результаты показали, что чередующиеся и утренние тренировки обеспечивают наиболее выраженное увеличение экспрессии UCP1 в БЖТ. У мышей на стандартной диете утренняя нагрузка вызывала особенно выраженный эффект по сравнению с другими временными режимами тренировок. UCP1-зависимый термогенез регулируется симпатической нервной системой и различными физиологическими стимулами. Усиленный эффект утренней физической нагрузки, вероятно, объясняется пиковым уровнем активности симпатической нервной системы в этот период суток, что способствует более активной активации β-адренергических сигнальных путей. Кроме того, ряд регуляторных белков в бурой жировой ткани демонстрирует временные паттерны экспрессии, зависящие от времени тренировки. По данным других исследований, PPARα активируется преимущественно в утренние часы, в то время как экспрессия другого митохондриального разобщающего белка UCP3 увеличивается в вечерний период [20]. Экспрессия гена UCP1 в БЖТ находится под строгим контролем циркадных часов. Как показано в ряде исследований, нарушение циркадных ритмов приводит к снижению термогенеза в БЖТ и уменьшению общего энергетического расхода организма. Будучи метаболически активной тканью, БЖТ подвержена выраженной циркадной регуляции ключевых функций, включая теплопродукцию, утилизацию глюкозы и липогенез. Основные гены циркадных часов, такие как BMAL1 и CLOCK, напрямую регулируют окисление жирных кислот и транскрипционную активацию UCP1. Их удаление на генетическом уровне значительно ослабляет экспрессию UCP1 в ответ на холодовой стресс или физическую нагрузку, что подчеркивает фундаментальную роль циркадных механизмов в поддержании термогенной функции БЖТ [21].
Заключение. Настоящее исследование подчеркивает важную роль времени проведения физических упражнений как ключевого фактора, влияющего на метаболическую эффективность тренировочных воздействий при СД2. Полученные результаты демонстрируют, что физическая активность способствует снижению массы тела и объема БЖТ, сопровождаясь повышением экспрессии гена UCP1. Время суток, в которое выполняются тренировки, оказывает существенное влияние на выраженность термогенного ответа. Наиболее выраженный термогенный отклик отмечен при утренних тренировках, тогда как чередующийся режим также демонстрирует тенденцию к повышению. Эти данные подчеркивают значение циркадных ритмов в регуляции метаболических процессов и подтверждают необходимость учета времени тренировки при разработке программ физической активности для пациентов с ожирением или СД2. Оптимизация временного режима тренировок может повысить адаптационный потенциал БЖТ и усилить положительное влияние физических упражнений на жировой обмен.
Конфликт интересов. Авторы заявляют об отсутствии конфликта интересов.
Conflict of interest. The authors declare no conflict of interest.
СПИСОК ЛИТЕРАТУРЫ
- Chandrasekaran, P. The role of obesity in type 2 diabetes mellitus – an overview / P. Chandrasekaran, R. Weiskirchen // International Journal of Molecular Sciences. – 2024. – Vol. 25. – No. 3. – P. 1882. DOI: 10.3390/ijms25031882.
- Brown and beige adipose tissue: one or different targets for treatment of obesity and obesity-related metabolic disorders? / Y.A. Kononova, T.P. Tuchina, A.Y. Babenko [et al.] // International Journal of Molecular Sciences. – 2024. – Vol. 25. – No. 24. – P. 13295. DOI: 10.3390/ijms252413295.
- Keys to the switch of fat burning: stimuli that trigger the uncoupling protein 1 (UCP1) activation in adipose tissue / D. Gong, J. Lei, X. He [et al.] // Lipids in Health and Disease. – 2024. – Vol. 23. – No. 1. – P. 322. DOI: 10.1186/s12944-024-02300-z.
- Adipose tissue expression of UCP1 and PRDM16 genes and their association with post-prandial triglyceride metabolism and glucose intolerance / B.K. Mishra, S.V. Madhu, M. Aslam, B.D. Banerjee // Diabetes Research and Clinical Practice. – 2021. – Vol. 182. – P. 109115. DOI: 10.1016/j.diabres.2021.109115.
- 5. Whitening and impaired glucose utilization of brown adipose tissue in a rat model of type 2 diabetes mellitus / C. Lapa, P. Arias-Loza, N. Hayakawa [et al.] // Scientific Reports. – 2017. – Vol. 7. – No. 1. – P. 16795. DOI: 10.1038/s41598-017-17148-w.
- UCP1 expression in human brown adipose tissue is inversely associated with cardiometabolic risk factors / T.-C. Kwok, L.E. Ramage, A. Kelman [et al.] // European Journal of Endocrinology. – 2024. – Vol. 191. – No. 1. – P. 106-115. DOI: 10.1093/ejendo/lvae074.
- Time of exercise specifies the impact on muscle metabolic pathways and systemic energy homeostasis / S. Sato, A.L. Basse, M. Schönke [et al.] // Cell Metabolism. – 2019. – Vol. 30. – No. 1. – P. 92-110.e4. DOI: 10.1016/j.cmet.2019.03.013.
- Aging attenuates diurnal lipid uptake by brown adipose tissue / W. In Het Panhuis, M. Schönke, R. Siebeler [et al.] // Aging (Albany NY). – 2022. – Vol. 14, – No. 19. – P. 7734-7751. DOI: 10.18632/aging.204318.
- Morphological, molecular and hormonal adaptations to early morning versus afternoon resistance training / M. Sedliak, M. Zeman, G. Buzgó [et al.] // Chronobiology International. – 2018. – Vol. 35. – No. 4. – P. 450-464. DOI: 10.1080/07420528.2017.1411360.
- Nirengi, S. Brown adipose tissue and aging: a potential role for exercise / S. Nirengi, K. Stanford // Experimental Gerontology. – 2023. – Vol. 2023. – P. 112218. DOI: 10.1016/j.exger.2023.112218.
- Effects of endurance training on glucose tolerance and plasma lipid levels in older men and women / D.R. Seals, J.M. Hagberg, B.F. Hurley [et al.] // JAMA. – 1984. – Vol. 252. – No. 5. – P. 645-649. DOI: 10.1001/jama.1984.03350050033022.
- Mice experimental model of diabetes mellitus type II based on high-fat diet / L.V. Kapilevich, A.N. Zakharova, E.Yu. Dyakova [et al.] // Bulletin of Siberian Medicine. – 2019. – Vol. 18. – No. 3. – P. 53-61. DOI: 10.20538/1682-0363-2019-3-53-61.
- Experimental simulation of cyclic training loads / A.N. Zakharova, Y. Kalinnikova, E.S. Negodenko [et al.] // Teoriya i Praktika Fizicheskoy Kultury. – 2020. – No. 10. – P. 26-27.
- Impact of aerobic exercise training on age-related changes in insulin sensitivity and muscle oxidative capacity / K.R. Short, J.L. Vittone, M.L. Bigelow [et al.] // Diabetes. – 2003. – Vol. 52. – No. 8. – P. 1888-1896. DOI: 10.2337/diabetes.52.8.1888.
- 15. Expression of the clock gene Rev-erbα in the brain controls the circadian organisation of food intake and locomotor activity, but not daily variations of energy metabolism / S. Sen, S. Dumont, D. Sage-Ciocca [et al.] // Journal of Neuroendocrinology. – 2018. – Vol. 30. – No. 1. – P. e12557. DOI: 10.1111/jne.12557.
- 16. High-fat diet disrupts behavioral and molecular circadian rhythms in mice / A. Kohsaka, A.D. Laposky, K.M. Ramsey [et al.] // Cell Metabolism. – 2007. – Vol. 6. – No. 5. – P. 414-421. DOI: 10.1016/j.cmet.2007.09.006.
- Day-night rhythm of skeletal muscle metabolism is disturbed in older, metabolically compromised individuals / J. Wefers, N.J. Connell, C.E. Fealy [et al.] // Molecular Metabolism. – 2020. – Vol. 41. – P. 101050. DOI: 10.1016/j.molmet.2020.101050.
- Afternoon exercise is more efficacious than morning exercise at improving blood glucose levels in individuals with type 2 diabetes: a randomised crossover trial / M. Savikj, B.M. Gabriel, P.S. Alm [et al.] // Diabetologia. – 2019. – Vol. 62. – No. 2. – P. 233-237. DOI: 10.1007/s00125-018-4767-z.
- Effects of performing morning versus afternoon exercise on glycemic control and hypoglycemia frequency in type 1 diabetes patients on sensor-augmented insulin pump therapy / A.M. Gomez, C. Gomez, P. Aschner [et al.] // Journal of Diabetes Science and Technology. – 2015. – Vol. 9. – No. 3. – P. 619-624. DOI: 10.1177/1932296814566233.
- Physiological and molecular dissection of daily variance in exercise capacity / S. Ezagouri, Z. Zwighaft, J. Sobel [et al.] // Cell Metabolism. – 2019. – Vol. 30. – No. 1. – P. 78-91. DOI: 10.1016/j.cmet.2019.03.012.
- Circadian rhythms and obesity: timekeeping governs lipid metabolism / Y. Li, J. Ma, K. Yao [et al.] // Journal of Pineal Research. – 2020. – Vol. 69. – No. 3. – P. e12682. DOI: 10.1111/jpi.12682.
СВЕДЕНИЯ ОБ АВТОРАХ:
Елена Юрьевна Дьякова – доктор медицинских наук, доцент, профессор кафедры спортивно-оздоровительного туризма, спортивной физиологии и медицины факультета физической культуры Национального исследовательского Томского государственного университета, Томск, e-mail: Адрес электронной почты защищен от спам-ботов. Для просмотра адреса в вашем браузере должен быть включен Javascript..
Юйфэнь Юнь – аспирант факультета физической культуры Национального исследовательского Томского государственного университета, Томск, e-mail: Адрес электронной почты защищен от спам-ботов. Для просмотра адреса в вашем браузере должен быть включен Javascript..
Ксения Геннадьевна Милованова – кандидат биологических наук, доцент кафедры спортивно-оздоровительного туризма, спортивной физиологии и медицины факультета физической культуры Национального исследовательского Томского государственного университета, Томск, e-mail: Адрес электронной почты защищен от спам-ботов. Для просмотра адреса в вашем браузере должен быть включен Javascript..
Сергей Андреевич Попов – аспирант кафедры спортивно-оздоровительного туризма, спортивной физиологии и медицины факультета физической культуры Национального исследовательского Томского государственного университета, Томск, e-mail: Адрес электронной почты защищен от спам-ботов. Для просмотра адреса в вашем браузере должен быть включен Javascript..
INFORMATION ABOUT THE AUTHORS:
Elena Yu. D’yakova – Doctor of Medical Sciences, Associate Professor, Professor of the Department of Sports and Recreative Tourism, Sports Physiology and Medicine of the Physical Culture Faculty, National Research Tomsk State University, Tomsk, e-mail: Адрес электронной почты защищен от спам-ботов. Для просмотра адреса в вашем браузере должен быть включен Javascript..
Yun Yufen – Postgraduate Student of the Faculty of Physical Culture, National Research Tomsk State University, Tomsk, e-mail: Адрес электронной почты защищен от спам-ботов. Для просмотра адреса в вашем браузере должен быть включен Javascript..
Ksenia G. Milovanova – Candidate of Biological Sciences, Associate Professor of the Department of Sports and Recreative Tourism, Sports Physiology and Medicine of the Physical Culture Faculty, National Research Tomsk State University, Tomsk, e-mail: Адрес электронной почты защищен от спам-ботов. Для просмотра адреса в вашем браузере должен быть включен Javascript..
Sergej A. Popov – Postgraduate Student of the Department of Sports and Recreative Tourism, Sports Physiology and Medicine of the Physical Culture Faculty, National Research Tomsk State University, Tomsk, e-mail: Адрес электронной почты защищен от спам-ботов. Для просмотра адреса в вашем браузере должен быть включен Javascript..
Для цитирования: Влияние времени выполнения физических упражнений на экспрессию разобщающего белка 1 в бурой жировой ткани у мышей с экспериментальной моделью сахарного диабета 2 типа / Е.Ю. Дьякова, Ю. Юнь, К.Г. Милованова, С.А. Попов // Современные вопросы биомедицины. – 2025. – Т. 9. – № S1(35). DOI: 10.24412/2588-0500-2025_09_S1_3
For citation: D’yakova E.Yu., Yun Yu., Milovanova K.G., Popov S.A. Effects of exercise timing on uncoupling protein 1 expression in brown adipose tissue in a mouse model of type 2 diabetes mellitus. Modern Issues of Biomedicine, 2025, vol. 9, no. S1(35). DOI: 10.24412/2588-0500-2025_09_S1_3